Архитектура сна
Доступно в полной версии:
Карта доказательств: факт, модель, интерпретация
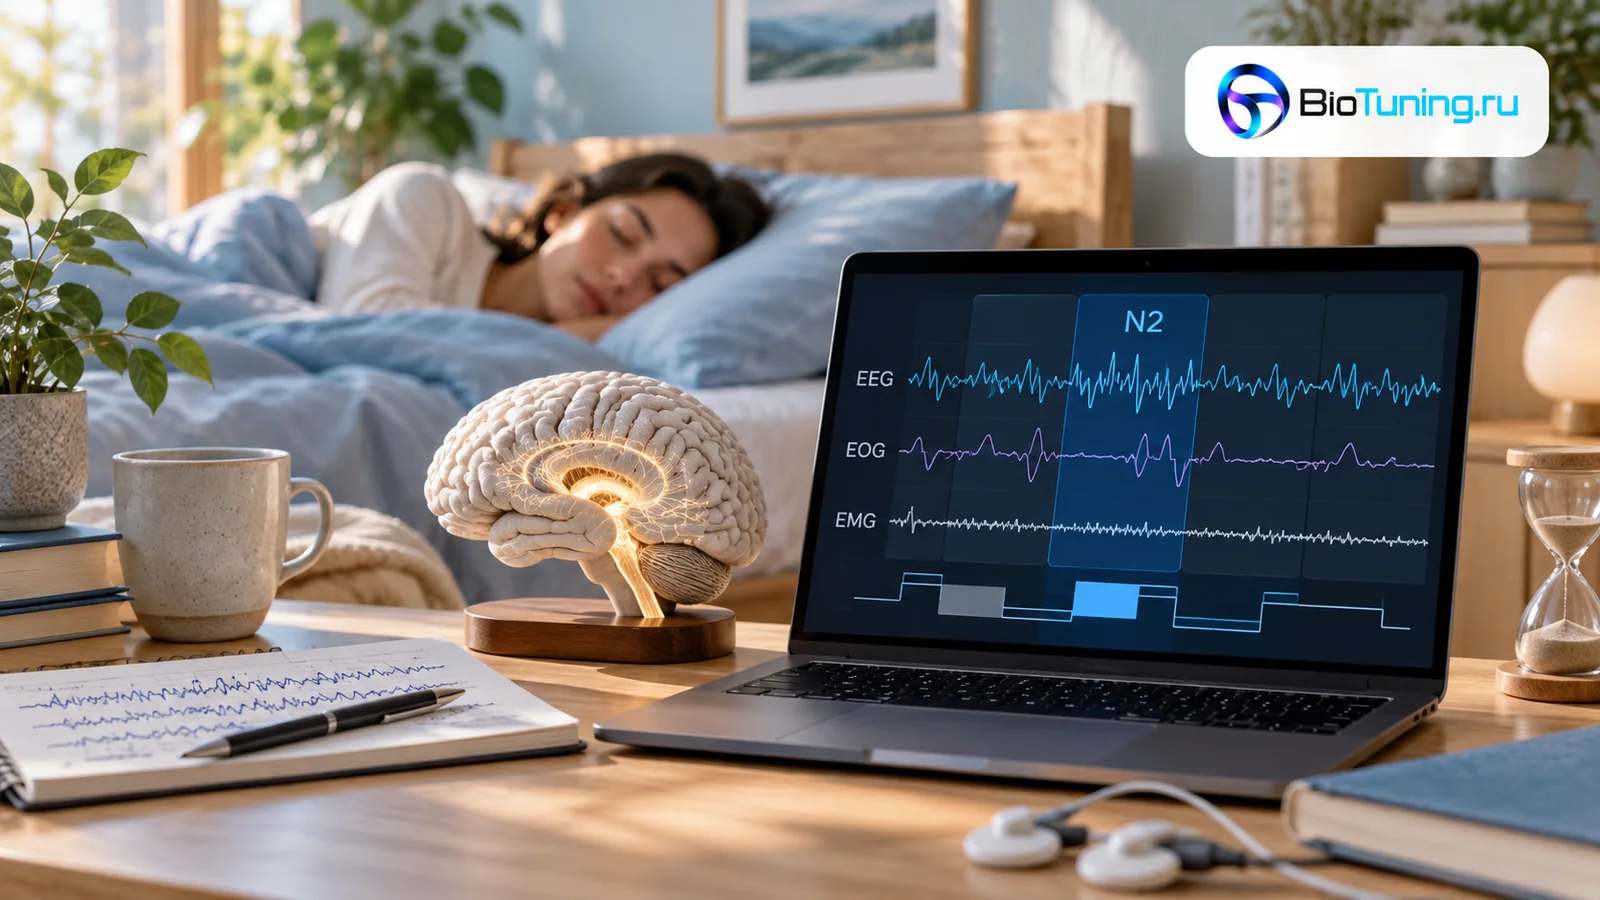
Факт в науке о сне нередко операционален: N2 присваивают 30-секундной эпохе по стандартным правилам, учитывая ЭЭГ и контекст соседних эпох; ЭОГ и ЭМГ помогают различать состояния. Это воспроизводимая классификация, а не буквальная «комната» мозга. Дискретная разметка описывает непрерывный биологический процесс [1] [4].
Модель объединяет наблюдения. Двухпроцессная модель связывает накопленное давление сна S и циркадный процесс C. Активная системная консолидация и синаптический гомеостаз описывают разные аспекты памяти и пластичности; они могут дополнять друг друга. Ни одна модель не исчерпывает все функции сна [8] [10] [14].
Уверенность зависит от вопроса: надёжно измеренная связь ещё не устанавливает её причину. Вмешательство может поддержать причинный механизм в конкретном эксперименте, но эффект у мышей или у небольшой клинической выборки не становится готовой рекомендацией для здорового человека.
Интерпретация соединяет уровни. Метафора партитуры помогает увидеть порядок состояний и избежать рейтинга «глубокий хороший, лёгкий плохой». Она не измеряет восстановление и не доказывает обязательность каждого перехода. Цветовая метка относится к указанному утверждению, а не ко всем соседним предположениям.
УСТАНОВЛЕНО
Что именно называют архитектурой сна
Архитектура сна — организация состояний во времени: длительность стадий N1, N2, N3 и REM, их последовательность, циклы и переходы. В клиническом отчёте её рассматривают вместе с длительностью сна, латентностью засыпания, эффективностью и пробуждениями. Эти показатели связаны, но не тождественны [1] [4].
Общее время сна — сумма эпох сна; время в постели включает также бодрствование. Эффективность сна обычно вычисляют как время сна, делённое на время в постели, умноженное на 100%. Долю стадии рассчитывают от общего времени сна: 90 минут N3 за шесть часов сна и за девять часов дают разные проценты. Определения интервала записи следует уточнять.
У взрослого ночной сон обычно начинается с NREM; N3 чаще выражен в ранних циклах, а REM удлиняется позднее. Последовательность не жёсткая, и цикл «около 90 минут» служит ориентиром. Реальная длительность меняется между людьми и в течение ночи [3] [5].
Гипнограмма показывает маршрут состояний, но скрывает дыхательные события, спектр ЭЭГ и автономные реакции. Хорошо организованный короткий сон также может быть недостаточен: для взрослых 18-60 лет AASM/SRS рекомендуют регулярно спать не менее семи часов, с учётом индивидуальной потребности [43].
УСТАНОВЛЕНО
Полисомнография: как ночь становится данными
Полисомнография объединяет ЭЭГ мозга, ЭОГ движений глаз и подбородочную ЭМГ мышечного тонуса. Клиническая запись также включает поток воздуха, дыхательные усилия, насыщение крови кислородом, ЭКГ, движения ног и другие каналы по задаче. Стадирование и поиск причин нарушенного сна используют разные части этой записи [1].
Стадии размечают эпохами по 30 секунд. Правила учитывают характерные события, их длительность, сочетание сигналов и соседние эпохи. Формула «выбирают преобладающий признак» недостаточна: например, N2 может продолжаться без нового веретена в каждой эпохе, а для N3 действует отдельный критерий медленных волн [1] [4].
Ступенчатая гипнограмма получается из стандартизированной разметки. Переход внутри эпохи и локальная неоднородность мозга могут остаться за пределами её разрешения. Согласие специалистов высоко не во всех стадиях; пограничные эпохи и артефакты требуют проверки.
Полисомнография не читает мысли и не сводит качество сна к одной цифре. Она назначается по медицинской задаче. Домашний тест на апноэ обычно использует более ограниченный набор сигналов и не является полным исследованием архитектуры; метод выбирает специалист [44].
ОРИГИНАЛЬНАЯ СХЕМА
07. Гипнограмма: линия, которая скрывает объём
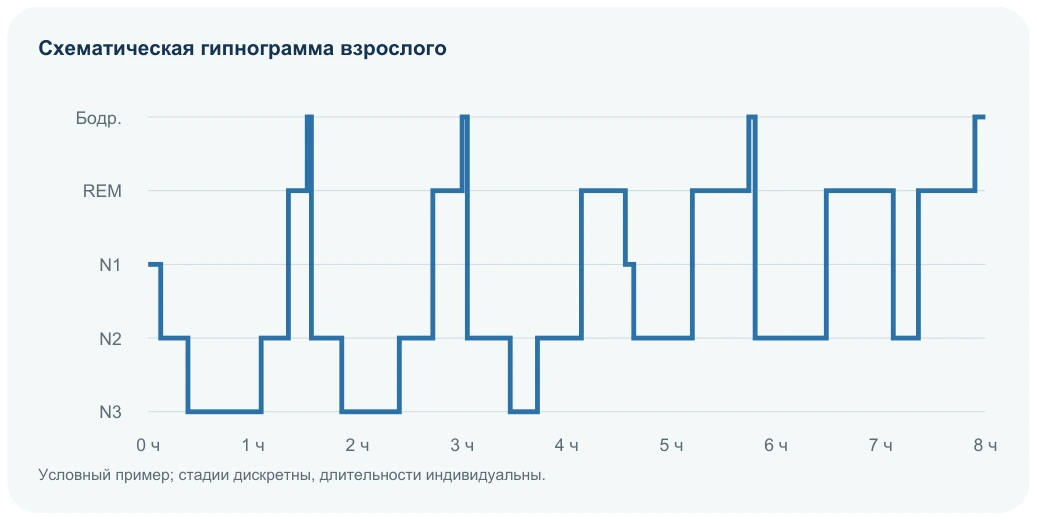
Схема показывает последовательность стадий, а не непрерывную шкалу глубины сна. Между уровнями проведены вертикальные переходы; длина горизонтального отрезка означает условную длительность стадии. N3 преобладает в ранних циклах, а REM-эпизоды в целом удлиняются к утру. Краткие пробуждения могут быть физиологичны [1] [3].
Это иллюстрация, а не запись конкретного человека. Не каждая ночь начинается и продолжается именно так. Схема не показывает мощность медленных волн, плотность веретён, дыхательные события, автономные колебания, содержание сновидений и региональные различия мозга. Одинаковые ступени могут скрывать разную микроструктуру.
МОДЕЛЬ
08. Два процесса: почему усталость не равна готовности заснуть
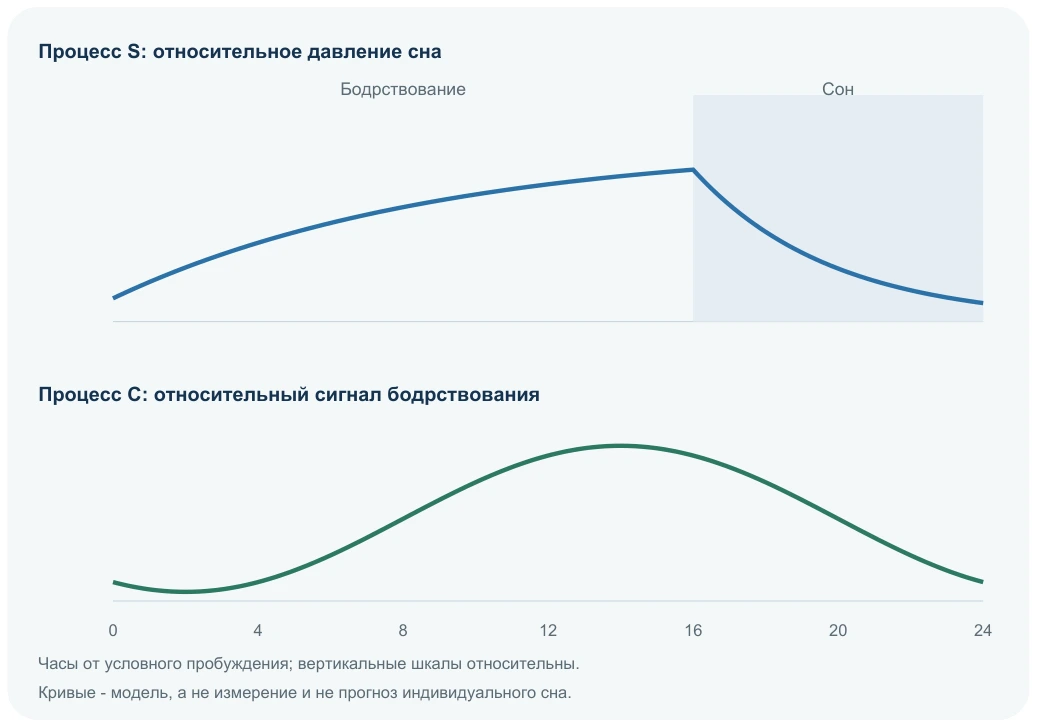
Процесс S растёт во время бодрствования и убывает во сне; одним из его физиологических показателей считают медленноволновую активность. Процесс C отражает циркадную регуляцию и в определённые часы поддерживает бодрствование даже при накопленном давлении сна. Их взаимодействие помогает объяснить вечернее «второе дыхание» и сонливость в биологическую ночь [8] [9].
На рисунке начало отсчёта — условное пробуждение, а сон занимает последние восемь часов. Вертикальные шкалы относительны и не сопоставимы как два измеренных сигнала. Модель не предсказывает точное время засыпания без знания индивидуальной фазы, истории сна, света и других влияний.
ФАКТ И ИНТЕРПРЕТАЦИЯ
N1: порог, а не комната
N1 — самая лёгкая стадия NREM. Альфа-активность спокойного бодрствования обычно уменьшается; появляются низкоамплитудная смешанная активность с преобладанием медленных частот и иногда медленные движения глаз. Мышечный тонус сохраняется. Человека легко разбудить, и он может считать, что ещё не спал [1] [4].
N1 обычно занимает небольшую часть ночи и может увеличиваться при частых переходах и фрагментации. Однако малая доля N1 сама по себе не доказывает хорошего сна, а большая не устанавливает диагноз. Возраст, условия записи и общее время сна меняют её процент.
На границе засыпания возможны гипнагогические образы, обрывки мыслей, ощущение падения и короткие мышечные вздрагивания. Эти явления часто встречаются при обычном засыпании; сновидный опыт не ограничен REM. Их значение определяется повторяемостью и сопутствующими симптомами, а не одним эпизодом.
Образ порога — авторская интерпретация переходного характера N1. Называть эту стадию бесполезной оснований нет; столь же преждевременно приписывать ей единственную доказанную функцию «плавного отключения от мира». Физиологическое описание и функциональное объяснение — разные уровни.
ФАКТ И ГИПОТЕЗА
N2: большая часть ночи и фильтрация сигналов
N2 обычно занимает крупнейшую долю сна взрослого. Её узнаваемые ЭЭГ-признаки — сонные веретёна и K-комплексы. Их появление и контекст помогают начать или продолжить разметку N2; каждую эпоху не требуется снабжать обоими событиями. Движения глаз обычно отсутствуют [1] [4].
N2 представляет самостоятельный режим работы сетей. Таламо-кортикальные взаимодействия создают веретёна, связанные с реакцией на внешние стимулы и некоторыми видами памяти. Объяснение их как «защиты сна» полезно, но не означает абсолютной блокировки звука или единственной функции [11].
K-комплекс может возникнуть спонтанно либо после стимула. Он связан с корковыми и автономными изменениями, иногда предшествует активации, иногда возникает при сохранённом сне. Формулировка «мозг проверяет среду» служит метафорой, а не установленным содержанием каждого события.
N2 часто появляется между N3, REM и бодрствованием и остаётся заметным на протяжении ночи. Его доля не показывает, насколько хорошо мозг фильтровал сигналы или запомнил информацию. Нельзя заменить физиологическую роль стадии рейтингом «лёгкий значит слабый».
РАБОЧАЯ ГИПОТЕЗА
11. Сонные веретёна: короткие окна координации
Веретёна — вспышки ритмической активности примерно в диапазоне 11–16 Гц, заметные в N2 и иногда на фоне N3. Их создают взаимодействия таламуса и коры. Они различаются по частоте, топографии и времени, а их плотность частично стабильна для человека.
В теориях консолидации веретёна участвуют в согласовании корковых медленных колебаний и быстрых гиппокампальных событий. Такая временная вложенность может открывать окна для переноса и перестройки следов памяти. Эксперименты со стимуляцией медленных колебаний и синхронизации поддерживают причинную роль некоторых ритмов, но эффект зависит от задачи и протокола [11] [12] [13].
Веретено также связывают с повышенным порогом реакции на звук. Это не абсолютный щит: значимый или достаточно сильный стимул может вызвать микропробуждение. Скорее система динамически решает, что игнорировать, а что пропустить дальше.
АВТОРСКОЕ РАССУЖДЕНИЕ
12. K-комплекс: проверка среды без полного пробуждения
K-комплекс — крупная двухфазная волна, характерная для N2. Он может появляться спонтанно или после звука, прикосновения и другого стимула. Парадокс: ответ мозга на событие способен как предшествовать пробуждению, так и помочь сохранить сон, включая последующее веретено.
Это хороший пример того, почему сон нельзя считать выключением сенсорных систем. Потоки сигналов продолжают обрабатываться, но доступ к сознательному ответу и двигательному действию меняется. Особо значимые стимулы — например, имя человека или тревожный звук — могут иметь иной шанс пройти фильтр, хотя результат зависит от стадии и интенсивности.
K-комплекс занимает секунды, тогда как стадия присваивается 30-секундной эпохе. Микрособытие и макроразметка принадлежат разным масштабам. Именно поэтому архитектура сна имеет «зернистость»: циклы, стадии, ритмы и отдельные события накладываются друг на друга.
Определения и электрофизиологические признаки согласуются с руководствами по стадированию [1] [4].
УСТАНОВЛЕНО
Источники и Список литературы
- 1. AASM (2023; исправления 2024). The AASM Manual for the Scoring of Sleep and Associated Events, Version 3 Стандарт разметки стадий, активаций и других событий. Версия 3 выпущена в феврале 2023 года; существует erratum. Открытая карточка подтверждает статус и версию. https://aasm.org/clinical-resources/scoring-manual/
- 2. NINDS. Brain Basics: Understanding Sleep — официальный веб-материал Официальный справочный обзор стадий и регуляции сна. Это обзорный веб-материал, не первичный эксперимент. Дата публикации не указана. https://www.ninds.nih.gov/health-information/public-education/brain-basics/brain-basics-understanding-sleep
- 3. Purves D. et al., editors (2001). Stages of Sleep. Neuroscience, 2nd edition Историческое учебное описание стадий из Neuroscience, 2nd edition. Старую четырёхступенчатую разметку NREM нельзя выдавать за текущую N1-N3. Для актуальной разметки используется источник 1. https://www.ncbi.nlm.nih.gov/books/NBK10996/
- 4. Patel A.K., Reddy V., Shumway K.R., Araujo J.F. (обновлено 26.01.2024). Physiology, Sleep Stages. StatPearls Справочное описание сигналов стадий; дата обновления подтверждена карточкой NCBI. Ориентировочные доли не являются индивидуальными целями. Текущий стандарт и правила переходов следует отличать от краткого учебного описания. https://www.ncbi.nlm.nih.gov/books/NBK526132/?report=reader
- 5. Institute of Medicine; Colten H.R., Altevogt B.M., editors (2006). Sleep Physiology Глава отчёта Sleep Disorders and Sleep Deprivation о регуляции и физиологии сна. Используется для широкого контекста; историческое разделение NREM на стадии 1-4 сопоставляется с текущими N1-N3, а не переносится буквально. https://www.ncbi.nlm.nih.gov/books/NBK19956/
- 6. Scammell et al. (2017). Neural circuitry of wakefulness and sleep Обзор распределённых нейронных цепей бодрствования, NREM и REM. Использован против идеи одного «центра сна» и для описания орексина, преоптических и стволовых сетей. https://doi.org/10.1016/j.neuron.2017.01.014
- 7. Weber & Dan (2016). Circuit-based interrogation of sleep control Обзор причинных оптогенетических исследований цепей сна у животных. Помог отделить сетевые механизмы от упрощённой модели переключателя; перенос на человека отмечен как ограничение. https://doi.org/10.1038/nature19773
- 8. Borbély et al. (2016). The two-process model of sleep regulation: a reappraisal Переоценка двухпроцессной модели: процесс S, циркадный процесс C и данные, которые модель объясняет. Использована как теоретический каркас без претензии на индивидуальный прогноз. https://doi.org/10.1111/jsr.12371
- 9. Borbély (2022). The two-process model of sleep regulation: beginnings and outlook Исторический и современный разбор двухпроцессной модели самим Борбели. Важен для понимания статуса кривых S и C как модели, а не непосредственно измеряемых объектов. https://pmc.ncbi.nlm.nih.gov/articles/PMC9540767/
- 10. Diekelmann & Born (2010). The memory function of sleep Авторитетный обзор роли сна в памяти: реактивация, медленные осцилляции, веретёна и гипотеза последовательных функций NREM/REM. Использован с оговоркой о зависимости от задачи. https://doi.org/10.1038/nrn2762
- 11. Klinzing et al. (2019). Mechanisms of systems memory consolidation during sleep Современный обзор механизмов системной консолидации: временное согласование медленных волн, веретён и гиппокампальных рипплов. Основа многоуровневой модели координации. https://doi.org/10.1038/s41593-019-0467-3
- 12. Ngo et al. (2013). Auditory closed-loop stimulation of the sleep slow oscillation enhances memory Эксперимент с замкнутой звуковой стимуляцией медленных осцилляций: причинное вмешательство изменило ритмы и память. Использован как пример, а не как бытовая рекомендация. https://doi.org/10.1016/j.neuron.2013.03.006
- 13. Geva-Sagiv M. et al. (2023). Augmenting hippocampal-prefrontal neuronal synchrony during sleep enhances memory consolidation in humans Исследование внутричерепной регистрации и стимуляции у пациентов с эпилепсией. Поддерживает роль временной координации в определённой задаче; не доказывает универсальной пользы и безопасности бытовой стимуляции. https://doi.org/10.1038/s41593-023-01324-5
- 14. Tononi G., Cirelli C. (2014). Sleep and the price of plasticity: from synaptic and cellular homeostasis to memory consolidation and integration Точная формулировка названия перспективной статьи о гипотезе синаптического гомеостаза. Глобальная перенормировка не означает равномерного ослабления всех связей; статус механистической гипотезы сохранён. https://doi.org/10.1016/j.neuron.2013.12.025
- 15. Xie et al. (2013). Sleep drives metabolite clearance from the adult brain Ключевой эксперимент на мышах: увеличение межклеточного пространства и выведение метаболитов во сне/анестезии. Нельзя напрямую превращать в количественный вывод о человеке. https://doi.org/10.1126/science.1241224
- 16. Fultz et al. (2019). Coupled electrophysiological, hemodynamic, and CSF oscillations in human sleep Одновременная ЭЭГ-fMRI у людей показала связанные волны нейронной активности, гемодинамики и цереброспинальной жидкости. Центральный человеческий источник для раздела о жидкостях мозга. https://doi.org/10.1126/science.aax5440
- 17. Hablitz L.M. et al. (2019). Increased glymphatic influx is correlated with high EEG delta power and low heart rate in mice under anesthesia Приток маркера сопоставлялся с ЭЭГ и пульсом у мышей под разными анестетиками. Приток не равен клиренсу; работа не измеряет ночной детокс у человека. https://doi.org/10.1126/sciadv.aav5447
- 18. Mendelsohn A.R., Larrick J.W. (2013). Sleep facilitates clearance of metabolites from the brain: glymphatic function in aging and neurodegenerative diseases Исторический комментарий к ранним глимфатическим данным. Не самостоятельный первичный эксперимент и не доказательство профилактики нейродегенерации. Современная дискуссия дополнена источниками 41-42. https://doi.org/10.1089/rej.2013.1530
- 19. Somers et al. (1993). Sympathetic-nerve activity during sleep in normal subjects Прямые измерения симпатической нервной активности у людей в разных стадиях. Основа различия спокойного NREM и автономной лабильности REM. https://doi.org/10.1056/NEJM199302043280502
- 20. Tobaldini et al. (2013). Heart rate variability in normal and pathological sleep Обзор вариабельности сердечного ритма во сне. Использован для стадийных тенденций и ограничений HRV как косвенного маркера. https://pmc.ncbi.nlm.nih.gov/articles/PMC3797399/
- 21. Van Cauter E., Copinschi G. (2000). Interrelationships between growth hormone and sleep Growth Hormone & IGF Research 10 Suppl B:S57-S62. Связь секреции гормона роста и медленного сна зависит от пола и возраста; её нельзя количественно восстанавливать по трекеру. https://doi.org/10.1016/S1096-6374(00)80011-8
- 22. Kim et al. (2015). The impact of sleep and circadian disturbance on hormones and metabolism Обзор сна, циркадных нарушений, гормонов и метаболизма. Использован для разведения циркадных и собственно сон-зависимых эффектов. https://pmc.ncbi.nlm.nih.gov/articles/PMC4377487/
- 23. Van Someren E.J.W. (2006). Mechanisms and functions of coupling between sleep and temperature rhythms Progress in Brain Research 153:309-324. Объясняет различие температуры кожи и центра тела и связь тепловых ритмов со сном; не задаёт единой температуры спальни. https://doi.org/10.1016/S0079-6123(06)53018-3
- 24. Harding et al. (2019). The temperature dependence of sleep Открытый современный обзор температурной зависимости сна. Использован для индивидуальности теплового комфорта и отказа от универсальной температуры. https://pmc.ncbi.nlm.nih.gov/articles/PMC6491889/
- 25. Besedovsky et al. (2019). The sleep-immune crosstalk in health and disease Масштабный Physiological Reviews о двунаправленной связи сна и иммунитета. Основа осторожных выводов о клеточных и цитокиновых изменениях. https://doi.org/10.1152/physrev.00010.2018
- 26. Irwin (2019). Sleep and inflammation: partners in sickness and in health Nature Reviews Immunology о сне и воспалении. Использован для различения острой иммунной адаптации и хронической дисрегуляции; причинность не упрощалась. https://doi.org/10.1038/s41577-019-0190-z
- 27. Mander et al. (2017). Sleep and human aging Обзор сна и старения в Neuron. Поддерживает изменения медленных волн, фрагментации и нейронных сетей на протяжении жизни. https://doi.org/10.1016/j.neuron.2017.02.004
- 28. Ohayon et al. (2004). Meta-analysis of quantitative sleep parameters from childhood to old age Метаанализ количественных параметров сна от детства до старости. Источник возрастных диапазонов и демонстрации большого межиндивидуального разброса. https://doi.org/10.1093/sleep/27.7.1255
- 29. Dijk D.-J., Groeger J.A., Stanley N., Deacon S. (2010). Age-related reduction in daytime sleep propensity and nocturnal slow wave sleep Sleep 33(2):211-223. Исследованы здоровые возрастные группы и экспериментальное нарушение SWS. Уменьшение SWS с возрастом не тождественно обязательному увеличению дневной сонливости. https://doi.org/10.1093/sleep/33.2.211
- 30. Berry R.B. et al. (2012). Rules for scoring respiratory events in sleep: update of the 2007 AASM Manual Историческая стандартизирующая статья о дыхательных событиях. Показывает необходимость совместного анализа потока, усилий, сатурации и активаций. Для текущих правил учитывается руководство AASM Version 3; это не домашний диагностический протокол. https://doi.org/10.5664/jcsm.2172
- 31. de Zambotti M., Cellini N., Goldstone A., Colrain I.M., Baker F.C. (2019). Wearable sleep technology in clinical and research settings Medicine & Science in Sports & Exercise 51(7):1538-1557. Обзор методов и ограничений носимых технологий; его данные не доказывают точность каждой современной модели или функции. https://doi.org/10.1249/MSS.0000000000001947
- 32. Chinoy E.D. et al. (2021). Performance of seven consumer sleep-tracking devices compared with polysomnography Sleep 44(5):zsaa291. Первичное сравнение устройств с PSG; результаты различаются по метрикам и моделям. Нельзя переносить показатель точности на все поколения трекеров. https://doi.org/10.1093/sleep/zsaa291
- 33. Lee T. et al. (2023). Accuracy of 11 wearable, nearable, and airable consumer sleep trackers: prospective multicenter validation study JMIR mHealth and uHealth 11:e50983. Сравнивались носимые, прикроватные и смартфонные решения, а не только часы. Поддерживает различия между устройствами и метриками; не является рейтингом моделей 2026 года. https://doi.org/10.2196/50983
- 34. Liu P.-K., Ting N., Chiu H.-C. et al. (2023). Validation of photoplethysmography- and acceleration-based sleep staging in a community sample: comparison with polysomnography and Actiwatch J Clin Sleep Med 19(10):1797-1810. Четырёхклассовый алгоритм объединяет N1/N2 в light; ошибки спокойного бодрствования заметнее при низкой эффективности сна. https://doi.org/10.5664/jcsm.10690
- 35. Вербицкий Е.В., Полуэктов М.Г. (2023). Регуляция сна как комплексный процесс Журнал неврологии и психиатрии им. С.С. Корсакова 123(5-2):8-14. Обзор эволюции моделей; фармакотерапевтические обсуждения не используются как рекомендации этого курса. https://doi.org/10.17116/jnevro20231230528
- 36. Зайцев А.Ю., Светлов В.А., Дубровин К.В., Шумов Д.Е. (2024). Сознание, сон, анестезия. О чем мы? Аналитический обзор. Часть I. Физиология сознания и сна Анестезиология и реаниматология (5):96-102. Обзор различий сна, сознания и анестезии; не основание считать анестезию физиологически равной обычному сну. https://doi.org/10.17116/anaesthesiology202405196
- 37. Пигарев И.Н., Пигарева М.Л. (2018). Прогресс изучения сна в эпоху электрофизиологии. Висцеральная теория сна Журнал неврологии и психиатрии им. С.С. Корсакова 118(4-2):5-13. Висцеральная теория остаётся обсуждаемой научной гипотезой, не общепринятой доказанной функцией сна. https://doi.org/10.17116/jnevro2018118425
- 38. Агальцов М.В., Ткачева О.Н. (2015). Изменения сна в пожилом и старческом возрасте (обзор) Профилактическая медицина 18(2):49-53. Возрастной и клинический контекст; исторические лечебные обсуждения не переносятся в рекомендации для самостоятельного применения. https://doi.org/10.17116/profmed201518249-53
- 39. Полуэктов М.Г. и др. (2024). Ведение пациентов с инсомнией при полиморбидной патологии. Проект клинических рекомендаций Журнал неврологии и психиатрии им. С.С. Корсакова 124(5-2):39-52. Это опубликованный проект, а не заявленный здесь действующий государственный стандарт. Используется для сочетания ночных жалоб и дневных последствий при достаточной возможности сна. https://doi.org/10.17116/jnevro202412405239
- 40. Пигарев И.Н., Пигарева М.Л. (2020). К истории наблюдения и некоторым методическим особенностям исследования проявлений локального сна Журнал неврологии и психиатрии им. С.С. Корсакова 120(9-2):91-97. Историко-методический контекст; физиологическую локальность дополняет первичное человеческое исследование 50. https://doi.org/10.17116/jnevro202012009291
- 41. Miao A., Luo T., Hsieh B. et al. (2024). Brain clearance is reduced during sleep and anesthesia Nature Neuroscience 27:1046-1050. У мышей обнаружен более медленный клиренс введённого красителя во сне и под анестезией. Контраст с ранними работами подчёркивает зависимость результата от метода; не доказывает бесполезности сна. https://doi.org/10.1038/s41593-024-01638-y
- 42. Hauglund N.L. et al. (2025). Norepinephrine-mediated slow vasomotion drives glymphatic clearance during sleep Cell 188(3):606-622.e17. У мышей исследованы норадреналиновые, сосудистые и жидкостные колебания NREM. Механистические результаты не переносятся автоматически на человека или на самостоятельное изменение лекарств. https://doi.org/10.1016/j.cell.2024.11.027
- 43. Watson N.F. et al.; AASM/SRS (2015). Recommended amount of sleep for a healthy adult: a joint consensus statement J Clin Sleep Med 11(6):591-592. Рекомендация регулярно спать не менее семи часов адресована взрослым 18-60 лет и учитывает индивидуальную потребность. Это ориентир длительности, а не нормы стадий. https://doi.org/10.5664/jcsm.4758
- 44. Kapur V.K. et al.; AASM (2017). Clinical practice guideline for diagnostic testing for adult obstructive sleep apnea J Clin Sleep Med 13(3):479-504. Различает PSG и домашнее исследование апноэ. Отрицательный ограниченный тест при сохраняющемся подозрении может требовать PSG; опросник и бытовой балл не заменяют диагностику. https://doi.org/10.5664/jcsm.6506
- 45. Khosla S. et al.; AASM (2018). Consumer sleep technology: an American Academy of Sleep Medicine position statement J Clin Sleep Med 14(5):877-880. Историческая позиция о необходимости валидации потребительских функций. Регуляторный статус и точность каждой современной функции требуют отдельной актуальной проверки. https://doi.org/10.5664/jcsm.7128
- 46. Edinger J.D. et al.; AASM (2021). Behavioral and psychological treatments for chronic insomnia disorder in adults: clinical practice guideline J Clin Sleep Med 17(2):255-262. Поддерживает многокомпонентную CBT-I; одна гигиена сна не предлагается как достаточная терапия. Упомянуто для маршрута помощи, без самостоятельного лечебного протокола. https://doi.org/10.5664/jcsm.8986
- 47. Howell M. et al.; AASM (2023). Management of REM sleep behavior disorder: clinical practice guideline J Clin Sleep Med 19(4):759-768. Использован принцип безопасной среды при травмоопасных ночных действиях. Не любое движение означает RBD; диагноз и медикаментозные решения остаются профессиональной задачей. https://doi.org/10.5664/jcsm.10424
- 48. NHTSA. Drowsy Driving — официальный материал по безопасности дорожного движения Источник для конкретной границы: опасная сонливость несовместима с вождением; при её появлении в пути нужно безопасно остановиться. Статистика аварий в курс не перенесена. https://www.nhtsa.gov/risky-driving/drowsy-driving
- 49. Siclari F. et al. (2017). The neural correlates of dreaming Nature Neuroscience 20:872-878. Первичное исследование с пробуждениями и ЭЭГ поддерживает наличие сновидного опыта в NREM и REM. Нейронный коррелят не доказывает универсального смысла или функции сновидений. https://doi.org/10.1038/nn.4545
- 50. Nir Y. et al. (2011). Regional slow waves and spindles in human sleep Neuron 70(1):153-169. Внутричерепные записи у нейрохирургических пациентов показали региональную неоднородность волн и веретён. Это важное человеческое свидетельство с ограничением переноса клинической выборки. https://doi.org/10.1016/j.neuron.2011.02.043