Нейропластичность во взрослом возрасте без обещаний «перепрошить мозг».
Доступно в полной версии:
Мозг, который меняется и сохраняет себя
Взрослый человек может впервые взять музыкальный инструмент, освоить незнакомую программу, начать разбираться в устройстве камеры или привыкнуть к новому району. Через некоторое время отдельные действия требуют меньше сознательного контроля. Трудный маршрут обретает ориентиры, сочетания клавиш перестают быть набором случайных знаков, а в музыке слышатся различия, которые прежде ускользали. За этими повседневными переменами стоят разные процессы: новые сведения, новые стратегии, тренировка восприятия и движения. Слово «нейропластичность» объединяет их возможные изменения на уровне нервной системы, но само по себе не объясняет, что именно произошло.
Работы со взрослыми участниками и животными показывают, что изменения возможны на нескольких масштабах: в работе синапсов, в организации сетей и в измеряемых характеристиках ткани. При этом методы видят разные стороны явления. МРТ не превращается в микроскоп для отдельных связей, а успешное выполнение задания не сообщает, какие клетки обеспечили успех. Обзор Zatorre, Fields и Johansen-Berg связывает эти масштабы, одновременно подчёркивая трудность их прямого сопоставления [01].
Образ «перепрошивки» обещает слишком простую причинную цепочку: выбрать нужную программу, загрузить её и получить новую личность. В живом мозге нет такой кнопки. Новый навык складывается на фоне уже имеющихся привычек, возможностей тела, предыдущего опыта и условий жизни. Изменение может быть локальным, постепенным, зависимым от контекста. Оно может облегчать одну задачу и почти ничего не менять в другой. Эти границы делают тему интереснее: вместо общей магии появляется возможность рассматривать конкретные превращения.
Авторская позиция этого материала состоит в следующем: взрослую пластичность разумно понимать как способность к адаптации, которая сосуществует со стабильностью. Если бы вся система беспрерывно перестраивалась без ограничений, прошлый опыт не помогал бы действовать завтра. Устойчивость знакомых маршрутов, слов и движений не противоречит изменениям. Она создаёт фон, на котором новый опыт становится узнаваемым и полезным.
Далее рассматриваются конкретные исследования, их дизайн, результаты и ограничения. Числа относятся к описанным выборкам, а бытовые истории являются вымышленными авторскими примерами. Здесь нет программы преобразования личности, нормы «правильной пластичности» или обещаний улучшить здоровье. Рамка BioTuning связана с качеством повседневной жизни: вниманием, движением, отдыхом, средой и технологиями. Интересное занятие может быть ценным само по себе, независимо от того, измерял ли кто-нибудь его влияние на мозг.
Материал носит образовательный характер. Это не персональная инструкция. Решения, затрагивающие здоровье, требуют консультации квалифицированного специалиста с учётом вашей ситуации
Что именно называют пластичностью
Разные масштабы одного слова
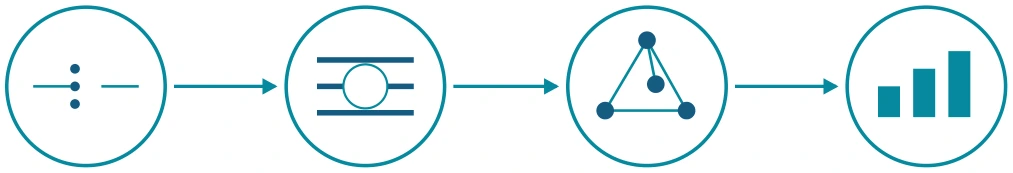
Функциональная пластичность касается изменений в том, как система обрабатывает сигналы и выполняет задачу. Структурная пластичность касается изменений её физических свойств. Эти категории связаны, но не взаимозаменяемы. Меняться может эффективность уже существующего пути, вклад разных участков сети или строение элементов ткани. Кроме того, «структурное изменение» в исследовании МРТ означает изменение конкретного измеряемого показателя, а не автоматически увеличение числа нейронов. Такая аккуратность особенно нужна, когда научный термин попадает в рекламу.
Синапс
Клетки и ткань
Сеть
Действие
Передача сигнала
Строение элементов
Вклад областей
Результат задачи
Микроскопия МРТ / гистология фМРТ / ЭЭГ Поведенческий тест
Каждый метод видит свою часть. Один масштаб не доказывает другой.
Иллюстрация 1. Четыре масштаба наблюдения. Это авторская схема, а не снимок мозга и не результат эксперимента. Основание различений: [01, 12].
В обзоре Dayan и Cohen двигательный навык описывается через приобретение, стабилизацию и сохранение. Быстрый этап может укладываться в один сеанс, а медленный — разворачиваться между сеансами. Длительность зависит от задачи: короткая последовательность нажатий и сложное музыкальное произведение не имеют одинакового календаря. Обзор также различает новый навык и адаптацию к изменившимся условиям движения [12]. Для бытового разговора это означает, что под одним выражением «стал лучше» могут скрываться разные истории.
Представим человека, который начал печатать с другой раскладкой. Сначала он вспоминает расположение букв, потом быстрее узнаёт отдельные сочетания, затем увереннее действует в реальной переписке. Улучшение скорости может объясняться накоплением знакомых последовательностей, снижением числа пауз или изменением стратегии поиска. Если наблюдатель видит только итоговую скорость, он не может выбрать единственный механизм. Слово «пластичность» здесь обозначает широкую возможность изменений, а не готовое объяснение каждого промежуточного шага.
Стабильность и изменение
В исследовании Yang, Pan и Gan повторно наблюдали дендритные шипики у мышей с помощью двухфотонной микроскопии. Новые двигательные и сенсорные ситуации сопровождались появлением и устранением шипиков; часть новых элементов сохранялась, а многие исчезали. Авторы рассматривают сочетание динамики и устойчивости как возможную основу длительных следов опыта. Ограничение принципиально: наблюдались определённые клетки и участки коры мыши, а не воспоминания взрослого человека [11].
Авторский вывод из этого сопоставления скромен: изменение системы не обязательно означает замену всей системы. Новая линия в рисунке может опираться на знакомые движения руки, а новая мелодия — на прежнее чувство ритма. Пластичность не требует воображать мозг как пустую поверхность. Взрослый возраст приносит не только ограничения, но и богатый запас уже сложившихся способов действия. Непредсказуемость возникает потому, что один и тот же новый опыт встречает у разных людей разные исходные условия.
Как исследование замечает перемены
Для проверки изменений нужен способ отличить новый эффект от привычного колебания. Однократное сравнение опытных и неопытных людей показывает различие, но не устанавливает его происхождение. Группы могут изначально отличаться мотивацией, склонностями или жизненными обстоятельствами. Повторные измерения тех же людей лучше показывают последовательность событий. Однако без подходящего сравнения трудно понять, произошло ли изменение из-за выбранного занятия, самого времени, повторения теста или другой перемены в жизни.
Дизайн Что он позволяет увидеть Что остаётся открытым
Разные группы в один момент Связь опыта и измеряемого признака
Направление причинности и исходные различия
До и после в одной группе Изменение относительно исходного уровня
Фоновые причины и эффект повторного теста
Случайное распределение с контролем
Более сильную проверку влияния вмешательства
Выбывание, ожидания, особенности выбранной выборки
Повторная проверка через время Сохранение результата Пользу в других задачах и условиях
Активная контрольная группа особенно полезна там, где новое занятие одновременно приносит общение, внимание исследователей и ощущение участия в важном событии. Сравнение с людьми, которые просто ничего не делают, объединяет эти факторы. Сравнение с другим интересным занятием помогает уточнить, что связано именно с требованием осваивать новый навык. Полного равенства ожиданий добиться трудно: участники обычно понимают, что делают, и могут по-разному оценивать перспективы своего занятия.
Ещё один вопрос — что считается единицей наблюдения. Тысячи клеток, снимков или попыток не превращают маленькую группу людей в большую. Если много измерений собрано у одних и тех же участников, эти измерения зависимы. Разнообразие данных может углубить описание, но способность переносить вывод на других людей всё ещё определяется составом и числом людей. Эта разница особенно заметна в современных работах, где сотни тысяч клеточных профилей происходят из нескольких десятков образцов.
При чтении результатов полезно разделять размер эффекта, его неопределённость и статистическую значимость. Небольшое p-значение не сообщает, насколько изменение ощутимо в быту. Отсутствие значимости не доказывает полного отсутствия эффекта: измерение могло быть слишком неточным. Но положительный результат в одном тесте также не разрешает объявить улучшенными все способности. Главный ориентир — совпадает ли измеренный исход с утверждением, которое предлагают принять.
Эти вопросы не обесценивают исследования. Они определяют, какой вывод выдерживает данные. Авторский пример: если приложение показывает повышение собственного рейтинга, корректное утверждение касается рейтинга в этом приложении. Чтобы говорить о меньшем количестве ошибок в рабочих документах, нужен отдельный исход, измеренный в похожей рабочей ситуации. Чтобы говорить о длительном эффекте, нужна проверка после паузы. Добавление таких проверок делает обещание конкретнее и проверяемее.
МРТ: изображение ткани и пределы интерпретации
Красочный рисунок мозга кажется прямым ответом на вопрос «где стало лучше». Однако цвет часто показывает область статистического различия между измерениями или группами. Он не означает, что участок приобрёл определённый процент новых полезных клеток. Показатели объёма, толщины коры и диффузии воды строятся разными методами обработки. Для каждого существуют собственные источники неопределённости, включая движение во время сканирования, границы тканей и выбор аналитических решений.
Критический обзор Thomas и Baker оценивал сообщения о структурных изменениях после тренировки. В доступной аннотации авторы указывают на проблемы специфичности, воспроизводимости и связи с поведением, а также на возможные артефакты дизайна и анализа. Это прочитанная аннотация, не изученный полный обзор. Поэтому здесь используется её общий методологический вывод, без пересказа отдельных разборов статей, которые были недоступны [13].
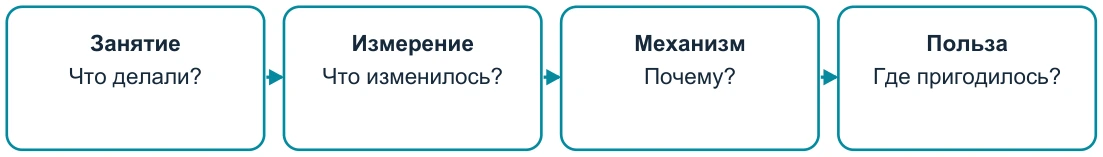
Каждый переход требует самостоятельного основания.
Схема 1. Между изображением и обещанием находятся отдельные ступени вывода. Стрелки обозначают вопросы проверки, а не гарантированные причинные переходы.
В систематическом обзоре Villa и коллег 2026 года, прочитанном в аннотации, объединены 30 работ о быстрых изменениях МРТ-показателей за интервалы менее двух часов. Авторы отмечают различия времени сканирования и задач, а также возможность вклада кровотока и внеклеточной жидкости в некоторые изменения показателей объёма. Поэтому даже быстрый и воспроизводимый сигнал ещё не равен появлению долговечного навыка [32]. Полная оценка включённых работ и риска смещения по аннотации невозможна.
Авторская аналогия здесь — фотография мастерской до и после работы. Видно, что стол выглядит иначе, но по двум фотографиям нельзя определить, какие инструменты приобрели, какие переставили и какие просто попали в другое освещение. Аналогия не описывает физику МРТ; она поясняет ограничение вывода по одному типу наблюдений. В реальном исследовании уточнение механизма требует дополнительных методов и специально выбранных сравнений.
Отсюда следует важное различие для повседневных интересов. Человеку может быть ценно уверенно редактировать фотографии без всякого сканирования. И наоборот, изменение исследовательского показателя не обязано ощущаться как заметное улучшение жизни. Поведенческий результат и физиологическое измерение отвечают на разные вопросы. Их совпадение усиливает картину, но расхождение тоже содержательно: оно помогает понять, где красивое объяснение было слишком простым.
Жонглирование: не упражнение для всего мозга
Изменения в течение недель
Driemeyer и коллеги исследовали 20 взрослых добровольцев, прежде не умевших жонглировать; средний возраст составлял 26,5 года. Повторные МРТ сопровождали освоение навыка и последующую паузу. Изменения показателей серого вещества в области обработки зрительного движения обнаруживались уже после недели. Авторы не получили простой зависимости от достигнутого мастерства или объёма практики. Ограничения включают малую выборку и использование некорректированного порога для части анализов; воображаемую репетицию контролировать не удалось [02].
Эта работа важна как наблюдение динамики, а не как аргумент «пять минут с мячами улучшают любой интеллект». Жонглирование включает зрительное слежение, координацию рук и прогноз траекторий. Изменения в областях, связанных с такой задачей, позволяют задавать уточняющие вопросы. Они не показывают автоматически лучший выбор финансовых решений, более крепкую память на имена или общий психологический рост. Именно соответствие задачи и результата делает эксперимент понятным.
Возраст и состав анализа
Boyke и коллеги включили 93 человека со средним возрастом около 60 лет; полный набор трёх измерений сохранился у 69. Среди них было 44 участника тренировки и 25 в контроле. В основной сравнительный анализ вошли 25 достигших определённого уровня жонглирования; анализ всех 44 давал сходное направление с меньшей значимостью. Авторы обнаружили изменения в hMT/V5 и некоторых других областях. Сильная сторона — повторные измерения, слабые стороны — выбывание, отбор по успешности и ограниченная обобщаемость выборки [03].
Разница между «включили», «завершили» и «проанализировали» меняет смысл истории. Если пересказать только лучшие результаты наиболее успешных участников, получится впечатление, будто занятие одинаково действует на каждого. Но возможность показать некоторый эффект и вероятность получить его у случайного человека — разные вопросы. Анализ успешной подгруппы полезен для поиска механизма; он требует осторожности при разговоре о доступности результата всем остальным.
Белое вещество
В работе Scholz и коллег 48 взрослых распределили в группу освоения жонглирования и контроль, по 24 человека. После шести недель практики обнаружили локальное повышение фракционной анизотропии в белом веществе около правой внутритеменной борозды; показатель оставался выше исходного после четырёх недель без практики. Сильной общей связи изменений с достигнутым мастерством не было. Фракционная анизотропия отражает особенности диффузии воды и зависит от нескольких свойств ткани, поэтому её повышение не доказывает само по себе увеличение миелина [04].
Сопоставление трёх работ не создаёт универсального рецепта. Оно показывает, что зрительно-двигательная задача может сопровождаться различными измеряемыми изменениями у взрослых. Возраст, сроки наблюдения, свойства показателей и правила анализа влияют на вывод. Для вымышленного героя, которому нравится играть с мячами, смысл занятия может заключаться в освоенном трюке и удовольствии от движения. Для научного вопроса нужны другие критерии: конкретное измерение, сравнение и проверка альтернативного объяснения.
Источники и Список литературы
- [01] Zatorre RJ, Fields RD, Johansen-Berg H. (2012). Plasticity in gray and white: neuroimaging changes in brain structure during learning. Доступ к полному тексту. Прочитано: Аннотация; Box 1 о методах МРТ; разделы о продольных исследованиях и клеточной интерпретации; заключительная часть. Ограничения: Обзор, не единая выборка; клеточный механизм нельзя определить по МРТ напрямую. · DOI: 10.1038/nn.3045 https://pmc.ncbi.nlm.nih.gov/articles/PMC3660656/ https://doi.org/10.1038/nn.3045
- [02] Driemeyer J, Boyke J, Gaser C, Büchel C, May A. (2008). Changes in gray matter induced by learning—revisited. Доступ к полному тексту. Прочитано: Аннотация; Materials and Methods; результаты и обсуждение временной динамики. Ограничения: 20 добровольцев; часть порогов без коррекции; воображаемая репетиция не контролировалась. · DOI: 10.1371/journal.pone.0002669 https://pmc.ncbi.nlm.nih.gov/articles/PMC2447176/ https://doi.org/10.1371/journal.pone.0002669
- [03] Boyke J, Driemeyer J, Gaser C, Büchel C, May A. (2008). Training-induced brain structure changes in the elderly. Доступ к полному тексту. Прочитано: Аннотация; Volunteers, MRI acquisition; Subjects и основные результаты; обсуждение. Ограничения: 93 включены, 69 полных наборов; анализ успешной подгруппы ограничивает обобщение. · DOI: 10.1523/jneurosci.0742-08.2008 https://pmc.ncbi.nlm.nih.gov/articles/PMC6670504/ https://doi.org/10.1523/jneurosci.0742-08.2008
- [04] Scholz J, Klein MC, Behrens TE, Johansen-Berg H. (2009). Training induces changes in white-matter architecture. Доступ к полному тексту. Прочитано: Основной текст, включая выборку, результаты, обсуждение; подписи рисунков. Ограничения: 48 взрослых; добавочные материалы отдельно не изучены; FA неспецифична к миелину. · DOI: 10.1038/nn.2412 https://pmc.ncbi.nlm.nih.gov/articles/PMC2770457/ https://doi.org/10.1038/nn.2412
- [05] Woollett K, Maguire EA. (2011). Acquiring "the Knowledge" of London's layout drives structural brain changes. Доступ к полному тексту. Прочитано: Summary; Results and Discussion, Time 1/Time 2; заключение и описание процедур. Ограничения: Продольное наблюдение; подробный отдельный supplement не изучен; 20 кандидатов не вернулись. · DOI: 10.1016/j.cub.2011.11.018 https://pmc.ncbi.nlm.nih.gov/articles/PMC3268356/ https://doi.org/10.1016/j.cub.2011.11.018
- [06] Mårtensson J, Eriksson J, Bodammer NC, Lindgren M, Johansson M, Nyberg L, Lövdén M. (2012). Growth of language-related brain areas after foreign language learning. Только аннотация. Прочитано: Только аннотация и библиографические сведения. Ограничения: Полный текст не прочитан; размер выборки и подробности контроля здесь не устанавливаются. · DOI: 10.1016/j.neuroimage.2012.06.043 https://pubmed.ncbi.nlm.nih.gov/22750568/ https://doi.org/10.1016/j.neuroimage.2012.06.043
- [07] Wenger E, Brozzoli C, Lindenberger U, Lövdén M. (2017). Expansion and Renormalization of Human Brain Structure During Skill Acquisition. Доступ к полному тексту. Прочитано: Аннотация; описание модели; серии повторных МРТ; примеры динамики и заключение. Ограничения: Теоретическое обобщение; малые серии; модель не является универсальным законом. · DOI: 10.1016/j.tics.2017.09.008 https://pmc.ncbi.nlm.nih.gov/articles/PMC5697733/ https://doi.org/10.1016/j.tics.2017.09.008
- [08] Taubert M, Draganski B, Anwander A, Müller K, Horstmann A, Villringer A, Ragert P. (2010). Dynamic properties of human brain structure: learning-related changes in cortical areas and associated fiber connections. Только аннотация. Прочитано: Только аннотация и библиографические сведения. Ограничения: Полный текст недоступен; выборка и подробности анализа не оценены. · DOI: 10.1523/jneurosci.2567-10.2010 https://pubmed.ncbi.nlm.nih.gov/20810887/ https://doi.org/10.1523/jneurosci.2567-10.2010
- [09] Sampaio-Baptista C, Khrapitchev AA, Foxley S, Schlagheck T, Scholz J, Jbabdi S, DeLuca GC, Miller KL, Taylor A, Thomas N, Kleim J, Sibson NR, Bannerman D, Johansen-Berg H. (2013). Motor skill learning induces changes in white matter microstructure and myelination. Доступ к полному тексту. Прочитано: Аннотация; Materials and Methods; результаты и обсуждение интерпретации. Ограничения: 72 крысы; посмертная МРТ; гистология у 24; нет исходной МРТ; человеческий эффект не проверялся. · DOI: 10.1523/jneurosci.3048-13.2013 https://pmc.ncbi.nlm.nih.gov/articles/PMC3858622/ https://doi.org/10.1523/jneurosci.3048-13.2013
- [10] McKenzie IA, Ohayon D, Li H, de Faria JP, Emery B, Tohyama K, Richardson WD. (2014). Motor skill learning requires active central myelination. Доступ к полному тексту. Прочитано: Аннотация; описание генетического вмешательства; двигательные результаты; подписи Fig.4/5. Ограничения: Мыши, разные экспериментальные серии; не испытание бытового вмешательства у людей. · DOI: 10.1126/science.1254960 https://pmc.ncbi.nlm.nih.gov/articles/PMC6324726/ https://doi.org/10.1126/science.1254960
- [11] Yang G, Pan F, Gan WB. (2009). Stably maintained dendritic spines are associated with lifelong memories. Доступ к полному тексту. Прочитано: Аннотация; результаты наблюдений шипиков; Methods summary и обсуждение; подписи рисунков. Ограничения: Мыши и определённые нейроны; длительные оценки частично модельные. · DOI: 10.1038/nature08577 https://pmc.ncbi.nlm.nih.gov/articles/PMC4724802/ https://doi.org/10.1038/nature08577
- [12] Dayan E, Cohen LG. (2011). Neuroplasticity subserving motor skill learning. Доступ к полному тексту. Прочитано: Summary; введение; fast/slow learning, консолидация; обсуждение сетевых моделей. Ограничения: Обзор разных задач и видов; нет единого календаря освоения. · DOI: 10.1016/j.neuron.2011.10.008 https://pmc.ncbi.nlm.nih.gov/articles/PMC3217208/ https://doi.org/10.1016/j.neuron.2011.10.008
- [13] Thomas C, Baker CI. (2013). Teaching an adult brain new tricks: a critical review of evidence for training-dependent structural plasticity in humans. Только аннотация. Прочитано: Только аннотация. Ограничения: Полный критический обзор не прочитан; его отдельные разборы статей здесь не пересказываются. · DOI: 10.1016/j.neuroimage.2012.03.069 https://pubmed.ncbi.nlm.nih.gov/22484409/ https://doi.org/10.1016/j.neuroimage.2012.03.069
- [14] Erickson KI, Voss MW, Prakash RS, Basak C, Szabo A, Chaddock L, Kim JS, Heo S, Alves H, White SM, Wojcicki TR, Mailey E, Vieira VJ, Martin SA, Pence BD, Woods JA, McAuley E, Kramer AF. (2011). Exercise training increases size of hippocampus and improves memory. Доступ к полному тексту. Прочитано: Аннотация; выборка и основные результаты; Hippocampal Volume and Spatial Memory; методы. Ограничения: 179 включены, 145 завершили программу, 120 вошли в анализ МРТ; внутригрупповая корреляция не заменяет разницу между группами по памяти. · DOI: 10.1073/pnas.1015950108 https://pmc.ncbi.nlm.nih.gov/articles/PMC3041121/ https://doi.org/10.1073/pnas.1015950108
- [15] Park DC, Lodi-Smith J, Drew L, Haber S, Hebrank A, Bischof GN, Aamodt W. (2014). The impact of sustained engagement on cognitive function in older adults: the Synapse Project. Доступ к полному тексту. Прочитано: Аннотация; дизайн и условия; основные результаты и обсуждение. Ограничения: Добровольцы; можно было исключить один вид активных занятий до распределения; существенный временной ресурс; многолетний эффект не установлен. · DOI: 10.1177/0956797613499592 https://pmc.ncbi.nlm.nih.gov/articles/PMC4154531/ https://doi.org/10.1177/0956797613499592
- [16] Rebok GW, Ball K, Guey LT, Jones RN, Kim HY, King JW, Marsiske M, Morris JN, Tennstedt SL, Unverzagt FW, Willis SL, ACTIVE Study Group. (2014). Ten-year effects of the advanced cognitive training for independent and vital elderly cognitive training trial on cognition and everyday functioning in older adults. Доступ к полному тексту. Прочитано: Аннотация; Design/Participants; interventions; результаты; обсуждение и определения эффектов. Ограничения: 2 832 указаны в аннотации, 2 802 в аналитической выборке; контроль без контакта; длительное выбывание; самоотчёты отличаются от объективных исходов. · DOI: 10.1111/jgs.12607 https://pmc.ncbi.nlm.nih.gov/articles/PMC4055506/ https://doi.org/10.1111/jgs.12607
- [17] Owen AM, Hampshire A, Grahn JA, Stenton R, Dajani S, Burns AS, Howard RJ, Ballard CG. (2010). Putting brain training to the test. Доступ к полному тексту. Прочитано: Основной текст; выборка и вмешательства; результаты; обсуждение; таблицы эффектов. Ограничения: 11 430 завершивших из 52 617 зарегистрировавшихся; онлайн-условия. · DOI: 10.1038/nature09042 https://pmc.ncbi.nlm.nih.gov/articles/PMC2884087/ https://doi.org/10.1038/nature09042
- [18] Simons DJ, Boot WR, Charness N, Gathercole SE, Chabris CF, Hambrick DZ, Stine-Morrow EA. (2016). Do "Brain-Training" Programs Work? Только аннотация. Прочитано: Только аннотация. Ограничения: Полный обзор 84 страниц не изучен; не проведена независимая оценка каждой программы. · DOI: 10.1177/1529100616661983 https://pubmed.ncbi.nlm.nih.gov/27697851/ https://doi.org/10.1177/1529100616661983
- [19] Melby-Lervåg M, Redick TS, Hulme C. (2016). Working Memory Training Does Not Improve Performance on Measures of Intelligence or Other Measures of "Far Transfer": Evidence From a Meta-Analytic Review. Доступ к полному тексту. Прочитано: Аннотация; основания тренировок; методологические сравнения; основные выводы. Ограничения: 87 публикаций, 145 сравнений; неоднородные группы; не все дополнительные таблицы изучены. · DOI: 10.1177/1745691616635612 https://pmc.ncbi.nlm.nih.gov/articles/PMC4968033/ https://doi.org/10.1177/1745691616635612
- [20] Sala G, Aksayli ND, Tatlidil KS, Tatsumi T, Gondo Y, Gobet F (2019). Near and Far Transfer in Cognitive Training: A Second-Order Meta-Analysis Доступ к полному тексту. Прочитано: Аннотация; методы второго порядка, active controls; результаты и General Discussion. Ограничения: Вывод зависит от исходных метаанализов и определений переноса; supplements не изучены. · DOI: 10.1525/collabra.203 https://livrepository.liverpool.ac.uk/3043493/1/203-3078-1-PB.pdf https://doi.org/10.1525/collabra.203
- [21] Walker MP, Brakefield T, Morgan A, Hobson JA, Stickgold R. (2002). Practice with sleep makes perfect: sleep-dependent motor skill learning. Только аннотация. Прочитано: Только аннотация. Ограничения: Детальная выборка и методы не прочитаны; процент не переносится на каждого человека. · DOI: 10.1016/s0896-6273(02)00746-8 https://pubmed.ncbi.nlm.nih.gov/12123620/ https://doi.org/10.1016/s0896-6273(02)00746-8
- [22] Rasch B, Born J. (2013). About sleep's role in memory. Доступ к полному тексту. Прочитано: Аннотация; вводные определения; части о двухэтапной памяти и активной консолидации. Ограничения: Большой обзор изучен в релевантных частях, не построчно целиком; модели имеют ограничения. · DOI: 10.1152/physrev.00032.2012 https://pmc.ncbi.nlm.nih.gov/articles/PMC3768102/ https://doi.org/10.1152/physrev.00032.2012
- [23] Klinzing JG, Niethard N, Born J. (2019). Mechanisms of systems memory consolidation during sleep. Только аннотация. Прочитано: Только аннотация. Ограничения: Полный обзор не прочитан; используется общая рамка, без детализации экспериментов. · DOI: 10.1038/s41593-019-0467-3 https://pubmed.ncbi.nlm.nih.gov/31451802/ https://doi.org/10.1038/s41593-019-0467-3
- [24] Soderstrom NC, Bjork RA. (2015). Learning versus performance: an integrative review. Только аннотация. Прочитано: Только аннотация. Ограничения: Полный текст не прочитан; отдельные эксперименты и величины эффектов не пересказываются. · DOI: 10.1177/1745691615569000 https://pubmed.ncbi.nlm.nih.gov/25910388/ https://doi.org/10.1177/1745691615569000
- [25] Cepeda NJ, Pashler H, Vul E, Wixted JT, Rohrer D. (2006). Distributed practice in verbal recall tasks: A review and quantitative synthesis. Только аннотация. Прочитано: Только аннотация. Ограничения: Полные таблицы не прочитаны; 317 экспериментов не дают универсальный интервал. · DOI: 10.1037/0033-2909.132.3.354 https://pubmed.ncbi.nlm.nih.gov/16719566/ https://doi.org/10.1037/0033-2909.132.3.354
- [26] Tononi G, Cirelli C. (2014). Sleep and the price of plasticity: from synaptic and cellular homeostasis to memory consolidation and integration. Доступ к полному тексту. Прочитано: Summary; rationale of SHY; молекулярные/электрофизиологические свидетельства; открытые вопросы. Ограничения: Это гипотеза и обзор, не персональный режим; не все приложения изучены. · DOI: 10.1016/j.neuron.2013.12.025 https://pmc.ncbi.nlm.nih.gov/articles/PMC3921176/ https://doi.org/10.1016/j.neuron.2013.12.025
- [27] Sorrells SF, Paredes MF, Cebrian-Silla A, Sandoval K, Qi D, Kelley KW, James D, Mayer S, Chang J, Auguste KI, Chang EF, Gutierrez AJ, Kriegstein AR, Mathern GW, Oldham MC, Huang EJ, Garcia-Verdugo JM, Yang Z, Alvarez-Buylla A. (2018). Human hippocampal neurogenesis drops sharply in children to undetectable levels in adults. Только аннотация. Прочитано: Только аннотация. Ограничения: 17 контрольных и 12 хирургических образцов взрослых; методы полного текста не оценены. · DOI: 10.1038/nature25975 https://pubmed.ncbi.nlm.nih.gov/29513649/ https://doi.org/10.1038/nature25975
- [28] Boldrini M, Fulmore CA, Tartt AN, Simeon LR, Pavlova I, Poposka V, Rosoklija GB, Stankov A, Arango V, Dwork AJ, Hen R, Mann JJ. (2018). Human Hippocampal Neurogenesis Persists throughout Aging. Доступ к полному тексту. Прочитано: Summary; постановка; выборка; основные результаты клеточных стадий и возрастных различий. Ограничения: 28 посмертных образцов; вывод зависит от маркеров и обработки ткани; не вмешательство. · DOI: 10.1016/j.stem.2018.03.015 https://pmc.ncbi.nlm.nih.gov/articles/PMC5957089/ https://doi.org/10.1016/j.stem.2018.03.015
- [29] Spalding KL, Bergmann O, Alkass K, Bernard S, Salehpour M, Huttner HB, Boström E, Westerlund I, Vial C, Buchholz BA, Possnert G, Mash DC, Druid H, Frisén J. (2013). Dynamics of hippocampal neurogenesis in adult humans. Доступ к полному тексту. Прочитано: Аннотация; метод углерода-14; Results и описание моделей; выводы. Ограничения: 55 нейрональных и 65 ненейрональных образцов; около 700 новых нейронов в каждом гиппокампе за день — оценка модели, не непосредственный подсчёт. · DOI: 10.1016/j.cell.2013.05.002 https://pmc.ncbi.nlm.nih.gov/articles/PMC4394608/ https://doi.org/10.1016/j.cell.2013.05.002
- [30] Смирнов И. В., Малышев А. Ю. (2025). Пластичность первичной зрительной коры и механизмы перцептивного обучения Выбранные разделы полного PDF. Прочитано: Аннотация; сенсорная пластичность; подкрепление; стимул-зависимое освоение; начало in vivo, с.189-195. Ограничения: Прочитаны выбранные разделы PDF; остальные не используются; виды и препараты различаются. · DOI: 10.31857/S0044467725020046 https://journals.rcsi.science/0044-4677/article/download/291442/268473 https://doi.org/10.31857/S0044467725020046
- [31] Швалев В. Н., Сосунов А. А., Челышев Ю. А. (2018). Астроциты и пластичность синапсов. Часть II. Внеклеточный матрикс и перинейрональная сеть Доступ к полному тексту. Прочитано: Реферат; определения матрикса/сетей; локализация; начало пластичности нейронов, с.38-39. Ограничения: Прочитаны релевантные фундаментальные части; клинические разделы не используются. · DOI: 10.17816/nb14132 https://journals.eco-vector.com/1027-4898/article/download/14132/11914 https://doi.org/10.17816/nb14132
- [32] Villa S, Kleinschroth F, Schönauer M, Kumral D. (2026). Experience-dependent rapid structural changes in the human brain: A systematic review. Только аннотация. Прочитано: Только аннотация. Ограничения: 30 работ; полный риск смещения не оценён; возможен вклад кровотока и жидкости. · DOI: 10.1016/j.neubiorev.2026.106736 https://pubmed.ncbi.nlm.nih.gov/42105826/ https://doi.org/10.1016/j.neubiorev.2026.106736
- [33] Karni A, Meyer G, Jezzard P, Adams MM, Turner R, Ungerleider LG. (1995). Functional MRI evidence for adult motor cortex plasticity during motor skill learning. Только аннотация. Прочитано: Только аннотация. Ограничения: Выборка и подробные методы не оценены; изменение специфично к задаче и руке. · DOI: 10.1038/377155a0 https://pubmed.ncbi.nlm.nih.gov/7675082/ https://doi.org/10.1038/377155a0
- [34] Disouky A, Sanborn MA, Sabitha KR, Mostafa MM, Ayala IA, Bennett DA, Lu Y, Zhou Y, Keene CD, Weintraub S, Gefen T, Mesulam MM, Geula C, Maienschein-Cline M, Rehman J, Lazarov O. (2026). Human hippocampal neurogenesis in adulthood, ageing and Alzheimer's disease. Доступ к полному тексту. Прочитано: Аннотация; введение; выделение клеточных типов; сравнение пяти групп и число образцов. Ограничения: 38 человек и 355 997 ядер; посмертное сравнение, не испытание привычки; supplements не изучены. · DOI: 10.1038/s41586-026-10169-4 https://pmc.ncbi.nlm.nih.gov/articles/PMC13048220/ https://doi.org/10.1038/s41586-026-10169-4
- [35] Dumitru I, Paterlini M, Zamboni M, Ziegenhain C, Giatrellis S, Saghaleyni R, Björklund Å, Alkass K, Tata M, Druid H, Sandberg R, Frisén J. (2025). Identification of proliferating neural progenitors in the adult human hippocampus. Только аннотация. Прочитано: Только аннотация. Ограничения: Полные методы и численность не оценены; обнаружение предшественников не равно бытовой пользе. · DOI: 10.1126/science.adu9575 https://pubmed.ncbi.nlm.nih.gov/40608919/ https://doi.org/10.1126/science.adu9575