Геронтолог о механизмах старения, которые наука считает наиболее вероятными.
Доступно в полной версии:
Старение как история живой системы
У старения нет одной узнаваемой сцены. В одной ткани меняется работа клеток, в другой — их состав, в третьей — способность вернуться к прежнему состоянию после нагрузки. На молекулярном уровне происходят события, которые внешне не видны. Поэтому вопрос «почему мы стареем?» распадается на несколько вопросов: что меняется, что запускает изменения, что их усиливает и почему системы поддержки не устраняют всё без остатка.
Название темы приглашает посмотреть на эту историю с позиции геронтологии. Однако перед вами авторское повествование по научным публикациям, а не интервью с вымышленным специалистом. Здесь нет одного героя, объявившего тайну раскрытой. Есть разные исследовательские группы, неодинаковые модели и несколько конкурирующих объяснений. Их сопоставление интереснее, чем обещание найти единственную «кнопку возраста».
Что означает «наиболее вероятные»
Вероятность здесь не выражена выдуманными процентами. Мы называем механизм правдоподобным, когда к нему сходятся разные виды свидетельств: изменения с возрастом, экспериментальные нарушения, связь с функцией, иногда восстановление функции после вмешательства. Ни один такой критерий сам по себе не устанавливает универсальную причину старения человека. Более убедительно совпадение нескольких независимых линий, особенно когда эффект воспроизводится в разных условиях.
В обзоре López-Otín и соавторов 2023 года предложены 12 взаимосвязанных признаков: нестабильность генома, укорочение теломер, эпигенетические изменения, потеря протеостаза, нарушения макроаутофагии, регуляции питательных сигналов, функции митохондрий, клеточная сенесценция, истощение стволовых клеток, изменение межклеточных связей, хроническое воспаление и дисбиоз. Это полезная карта исследовательского поля, а не 12 независимых таймеров. Авторы предлагают оценивать возрастные изменения и возможность экспериментально ускорить или замедлить соответствующие процессы. [1]
В дальнейшем мы будем различать наблюдение, эксперимент и интерпретацию. Наблюдение описывает связь. Эксперимент меняет условия. Интерпретация связывает результаты в объяснение. Слова «может», «предполагается» и «в этой модели» сохраняют смысл результатов, когда данных ещё недостаточно для широкого вывода.
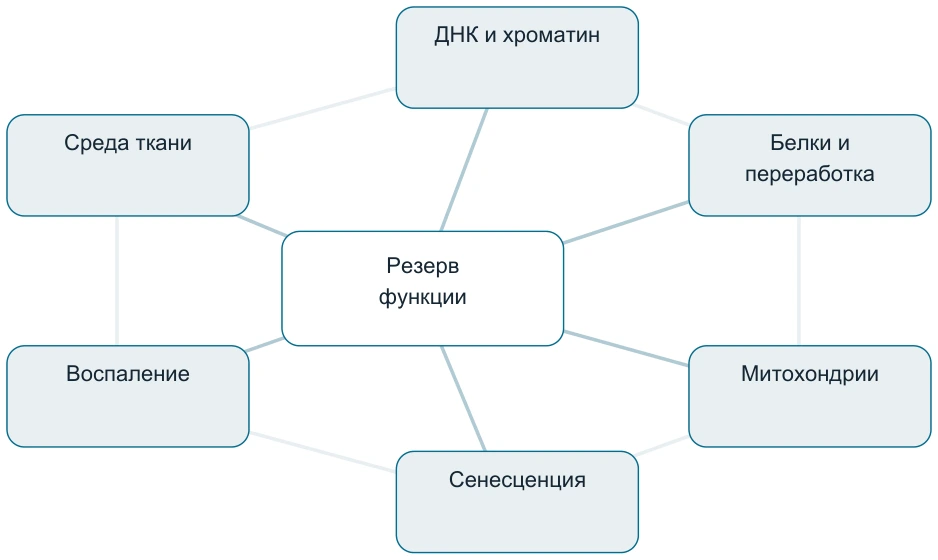
Рисунок 1. Оригинальная концептуальная карта взаимосвязей. Линии обозначают возможность взаимодействия, а не измеренную силу или доказанную последовательность. Основание для сетевой рамки: [1], [4]. Расположение узлов — авторское.
Повседневная рамка BioTuning — качество жизни: сон, движение, питание, внимание, энергия и восстановление. Молекулярная история помогает увидеть сложность организма, но не превращает бытовое решение в гарантированное управление возрастом. Между правдоподобным механизмом и доказанной пользой человеку остаётся большая исследовательская дистанция.
Материал носит образовательный характер. Это не персональная инструкция. Решения, затрагивающие здоровье, требуют консультации квалифицированного специалиста с учётом вашей ситуации
Как отличить причину от спутника
Представим две комнаты, в которых постепенно становится темнее. В первой тускнеет лампа, во второй на стекле накапливается пыль. Одинаковое наблюдение — снижение освещённости — ещё не говорит, какое событие первично. Если смотреть только на итоговый показатель, можно спутать причину, компенсирующую реакцию и следствие. С биологическими маркерами такая ошибка сложнее, потому что систем много и они взаимодействуют.
Четыре ступени свидетельств
Первая ступень — возрастная ассоциация. Исследователь находит показатель, который отличается у молодых и пожилых участников. Вторая — изменение предполагаемого механизма. Например, генетическая конструкция нарушает конкретную функцию. Третья — восстановление части исходов при воздействии на этот механизм. Четвёртая — подтверждённая польза человеку по значимым результатам и с приемлемым риском. Переход между ступенями требует новых данных, а не более яркого заголовка.
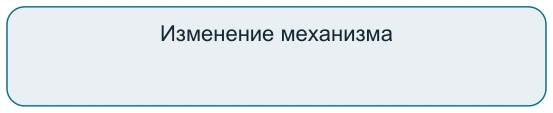
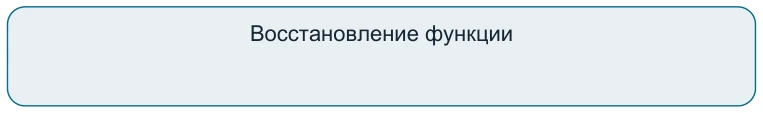
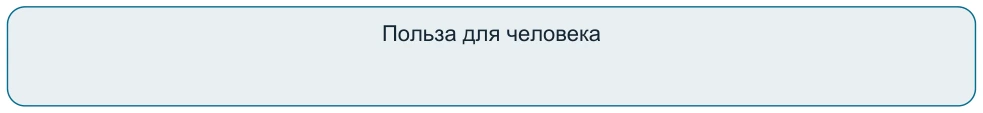
Схема 1. Оригинальная схема вопросов к доказательству. Это не рейтинг конкретных механизмов и не количественная шкала. Расширение блоков показывает рост требований к переносу вывода.
Сильный результат на клеточной культуре может точно раскрывать внутриклеточную цепочку и почти ничего не говорить о длительности жизни организма. Большое наблюдение у людей хорошо отражает реальную неоднородность, но оставляет возможность обратной причинности. Рандомизация уменьшает смешение факторов, однако не исправляет автоматически короткое наблюдение, неполную приверженность или недостаточно подходящий конечный показатель.
Защитная реакция тоже меняется с возрастом
Ogrodnik и Gladyshev предлагают различать причины, краткосрочные ответы и долгосрочные адаптации. Среди адаптаций могут быть такие, которые сначала помогают клетке выжить, а затем ухудшают состояние окружающей ткани. Их концептуальная модель обсуждает сенесценцию, эпигенетические изменения и стволовые клетки именно в этом контексте. Следовательно, возрастное изменение нельзя автоматически объявить повреждением, которое полезно полностью убрать. [2]
Skowronska-Krawczyk также предлагает двигаться от перечня признаков к разделению ранних молекулярных событий и последующих клеточных и тканевых реакций. Этот комментарий подчёркивает причинный вопрос, но не устанавливает одну последовательность для всех тканей. Между двумя концептуальными схемами полезно видеть различие: одна систематизирует признаки, другая пытается объяснить их порядок. [38]
Контрпример делает объяснение сильнее
Для механизма полезно спросить: какое наблюдение опровергло бы его ведущую роль? Если изменение показателя всегда интерпретируется в пользу гипотезы, проверяемость снижается. Например, увеличение аутофагического маркера может отражать активную переработку, а может сопровождать её нарушение. Если оба результата называют «омоложением», теряется связь между измерением и смыслом.
Авторский принцип этого текста прост: каждое громкое обобщение должно пережить три уточнения — объект исследования, измеренный исход и границу переноса. Эти уточнения не уменьшают ценность эксперимента. Они позволяют понять, в чём его ценность действительно состоит.
Эволюционный фон: почему ремонт конечен
Живой организм сохраняет порядок в изменяющейся среде. Поддержка тканей, рост, размножение, защита и ответ на нагрузку используют общие ресурсы. Эволюционная перспектива рассматривает такую систему как результат отбора в конкретных условиях существования, а не как устройство, спроектированное для неограниченной службы.
Кирквуд связывает старение с накоплением соматических повреждений при ограниченных вложениях в поддержку и ремонт. В его обзоре также обсуждаются поздно действующие неблагоприятные варианты генов и варианты, дающие преимущество раньше, но вредящие позже. Это объясняет, почему высокая эффективность на одном этапе жизни может сосуществовать с недостаточной поддержкой на другом. Эволюционное объяснение не означает, что организм намеренно запускает разрушение в определённый день. [3]
Два смысла слова «программа»
У клеток есть регулируемые программы ответа, развития и деления. Из существования этих программ не следует, что естественный отбор создал единую цель — состарить организм. Здесь важна логическая граница: регулируемость процесса говорит о наличии управляющих цепей; эволюционное назначение этих цепей — отдельный вопрос.
Lemaître и соавторы предлагают связывать генетические модели старения с промежуточными физиологическими уровнями. В их иерархии гены влияют на физиологию и свойства организма, а те — на возрастные показатели выживания и размножения. Авторы сопоставляют теорию распределения ресурсов между поддержкой и иными задачами с идеей недостаточно оптимизированных поздних продолжений процессов развития. Обе рамки могут дополнять друг друга; эссе не доказывает исключительность одной. [37]
Мутация способна изменить темп истории
Эксперимент Kenyon и соавторов с нематодой C. elegans показал, что мутации daf-2 могли увеличивать жизнь более чем вдвое; для эффекта требовался daf-16. Это важная демонстрация влияния генетической регуляции на длительность жизни модельного организма. Она не означает, что такой же процент переносится на человека или что любой способ уменьшить питательные сигналы будет полезен. [19]
Позднейший обзор Kenyon помещает подобные находки в историю генетики старения. Разница длительности жизни видов подсказывает, что живые системы могут поддерживаться очень по-разному. Но сравнение видов не даёт прямого рецепта: у них различаются размеры, среда, размножение и множество физиологических настроек. [20]
Обзор Москалёва и соавторов подчёркивает взаимосвязь генов, эпигенетических механизмов и ответа на стресс. Этот российский научный вклад полезен для сетевого взгляда: долговечность системы не обязана зависеть от отдельного «гена долголетия». Обобщение обзора остаётся теоретической рамкой, а не проверкой конкретного бытового вмешательства. [4]
Эволюционная глава объясняет, почему идеальный ремонт не является исходной нормой. Следующие разделы рассматривают, где именно возникают трудности и как эксперименты помогают отличать правдоподобную цепь от красивой метафоры.
ДНК и теломеры: сохранность текста и краёв
ДНК удобно сравнить с текстом, но такой образ неполон. Молекула должна не только хранить последовательность, но и копироваться, считываться и упаковываться в работающей клетке. Повреждение структуры молекулы и закрепившееся изменение её последовательности — разные события. Ремонт может устранить повреждение; ошибка, сохранившаяся после копирования, уже относится к мутациям.
Почему повреждения ДНК считаются важным кандидатом
Schumacher и соавторы рассматривают повреждение ДНК как потенциально объединяющий фактор множества возрастных изменений. Вместе с тем они отмечают неопределённость относительной роли и иерархии механизмов. В доступном фрагменте обсуждения есть существенное возражение: данные о том, что усиление ремонта само по себе продлевает жизнь, ограничены. Поэтому важность повреждений и универсальная достаточность их устранения — разные утверждения. [5]
Исследование Cagan и соавторов сравнило соматические мутации в 208 кишечных криптах 56 особей 16 видов млекопитающих. Скорость накопления мутаций за год была обратно связана с длительностью жизни видов. У долгоживущих видов процесс шёл медленнее, несмотря на большое разнообразие размеров тела. Это поддерживает связь поддержания генома с эволюцией долговечности, но исследование не показывает, что число мутаций одной человеческой ткани определяет срок жизни человека. [6]
Что именно сравнивали
Кишечная крипта — небольшой тканевый отсек, а не усреднённый «геном всего тела». Такое ограничение не делает результат слабым: оно делает сравнение конкретным. Но перенос на мозг, мышцы или все клетки человека потребовал бы отдельных наблюдений. Нельзя незаметно заменить формулировку «связь между видами» формулировкой «причина различий между любыми двумя людьми».
Митохондрии
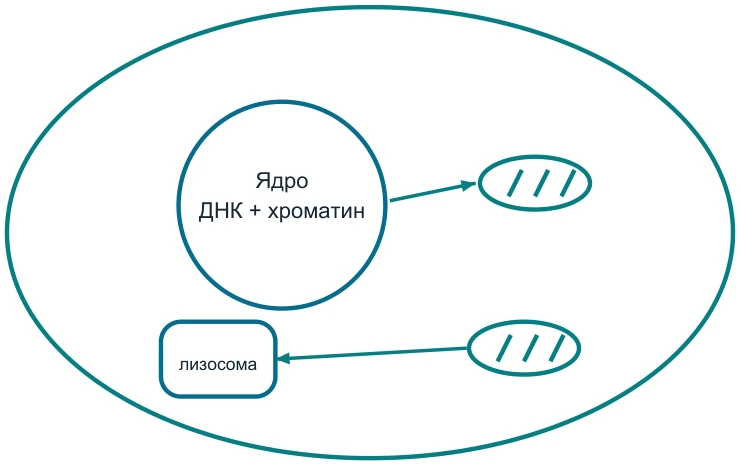
Системы ремонта работают совместно
Рисунок 2. Оригинальная условная иллюстрация клеточного района. Ядро, митохондрии и лизосома показаны схематически, без масштаба. Смысл — совместная работа хранения, энергии и переработки, а не анатомическая реконструкция. Тематические основания: [5], [14], [17].
Теломеры не являются общим обратным отсчётом
Теломеры — защитные структуры на концах хромосом. В обзоре Bär и Blasco обсуждаются их укорочение, связь с функцией тканей и эксперименты с теломеразой. Этот механизм особенно интересен там, где важны деление и восполнение клеток. Однако величина теломерного показателя зависит от того, какие клетки измеряются и в каком контексте. Обзор не устанавливает, что активация теломеразы здоровым человеком безопасно продлевает ему жизнь. [7]
Метафора «длиннее край — моложе организм» опускает контроль деления и неоднородность клеток. Работа системы требует одновременно способности обновляться и способности ограничивать нежелательное размножение. Оптимум такого баланса нельзя описать одним направлением «больше всегда лучше».
Три разных вопроса к геному
Сохранилась ли последовательность? Может ли клетка исправить повреждение? Сохранила ли она правильную организацию считывания? Эти вопросы связаны, но не тождественны. Геномная стабильность относится к первому и второму; эпигенетическая организация выводит нас к третьему. Их разделение помогает избежать популярной ошибки, когда все молекулярные изменения называют «мутациями».
Для повседневного читателя главная интрига здесь — не поиск персонального числа повреждений. Это идея о том, что качество поддержки информационной молекулы зависит от согласованности многих процессов и от истории конкретной ткани.
Эпигенетика: настройки чтения и возрастные часы
Одинаковая последовательность ДНК не требует одинаковой работы всех клеток. Клетке мышцы и клетке кожи нужны разные активные программы. Эпигенетические механизмы участвуют в организации доступа к генетической информации. Метафора «настройки чтения» полезна, пока мы помним, что речь идёт о физических молекулах, взаимодействиях и состоянии хроматина.
Предсказатель возраста и причина возраста
Horvath построил многотканевой предиктор возраста по метилированию ДНК: примерно 8000 образцов, 82 набора данных, 51 тип ткани или клеток и 353 CpG-позиции в итоговой модели. Это показало, что молекулярные паттерны позволяют оценивать возраст в широком наборе материалов. Но возможность предсказать переменную не доказывает, что выбранные признаки причинно управляют ею. [8]
Levine и соавторы создали DNAm PhenoAge, используя связь с фенотипическим риском, а не только с календарным возрастом. Такой подход меняет цель алгоритма. Он стремится лучше отражать различия в исходах, а не просто угадывать дату рождения. Предсказательная способность остаётся отдельной от вопроса, улучшится ли жизнь при вмешательстве, снижающем число этого показателя. [9]
У часов есть как минимум три источника смысла: материал измерения, целевая переменная и группа, на которой модель проверялась. Результаты двух алгоритмов могут различаться потому, что они отвечают на разные вопросы. Представлять все «биологические возрасты» как взаимозаменяемые единицы — значит потерять эту разницу.
Перепрограммирование как экспериментальная интрига
Ocampo и соавторы изучали частичное перепрограммирование с факторами OSKM. Продление жизни было показано в мышиной модели преждевременного старения; у старых обычных мышей исследовали улучшение восстановления после определённых повреждений. Это разные результаты. В подписях к рисункам описаны и неблагоприятные эффекты иной конструкции, включая тератомы. История демонстрирует возможность влиять на клеточное состояние и одновременно необходимость строгих ограничений. [12]
Lu и соавторы использовали OSK в клетках сетчатки мышей. Они наблюдали изменения метилирования и транскриптома, регенерацию аксонов и улучшение зрительной функции в изученных моделях. Этот результат интересен именно сочетанием молекулярных и функциональных исходов. Однако сетчатка мыши в эксперименте не равна всем тканям человека; безопасное применение такой идеи к человеку требует самостоятельных испытаний. [11]
Возвращение функции не равно возвращению всей истории
Авторское различие: восстановить отдельную функцию — значит изменить конкретный результат, а «омолодить весь организм» — заявить гораздо больше. Даже когда улучшение подтверждено, нужно уточнять длительность, область действия, сохранность клеточной идентичности и побочные эффекты. Эти вопросы сохраняются, если возрастные часы тоже показывают сдвиг.
Эпигенетическая гипотеза сильна как исследовательское направление, потому что связывает организацию генома с поведением клеток. Но зрелое объяснение должно учитывать и накопленные повреждения, и среду ткани. Настройки чтения существуют внутри работающей системы, а не над ней.
Источники и Список литературы
- [1] López-Otín C., Blasco M.A., Partridge L., Serrano M., Kroemer G. Hallmarks of aging: An expanding universe. Cell (2023). . Прочитаны аннотация и декларация интересов PubMed. Обзор, предложивший 12 взаимосвязанных признаков. Полный текст не прочитан: попытки открыть доступные PDF не дали текста. Классификация не является испытанием у людей. У ряда авторов заявлены коммерческие интересы. https://pubmed.ncbi.nlm.nih.gov/36599349/
- [2] Ogrodnik M., Gladyshev V.N. The meaning of adaptation in aging: insights from cellular senescence, epigenetic clocks and stem cell alterations. Nature Aging (2023). . Прочитаны аннотация и подпись к рисунку 1. Концептуальный обзор: разграничение причин, ответов и адаптаций. Это интерпретационная модель, а не установленная единая последовательность старения; полный текст не изучен. https://pubmed.ncbi.nlm.nih.gov/37386259/
- [3] Kirkwood T.B.L. Understanding ageing from an evolutionary perspective. Journal of Internal Medicine (2008). . Прочитана аннотация в индексированной записи PubMed. Эволюционное объяснение ограниченных вложений в ремонт и поздних неблагоприятных эффектов генов. Исторический обзор; не даёт персональных прогнозов. Полный текст не прочитан. https://pubmed.ncbi.nlm.nih.gov/18226090/
- [4] Moskalev A.A., Aliper A.M., Smit-McBride Z., Buzdin A., Zhavoronkov A. Genetics and epigenetics of aging and longevity. Cell Cycle (2014). . Прочитаны аннотация, авторство и сведения об организациях. Обзор с участием российских научных организаций. Рассматривает взаимосвязанные генетические и эпигенетические регуляторы долголетия. Классификация не проверяет эффективность вмешательства у человека. Полный текст не прочитан. https://pubmed.ncbi.nlm.nih.gov/24603410/
- [5] Schumacher B., Pothof J., Vijg J., Hoeijmakers J.H.J. The central role of DNA damage in the ageing process. Nature (2021). . Прочитана аннотация; также доступен индексированный фрагмент обсуждения возражений. Обзор обосновывает потенциально объединяющую роль повреждений ДНК. Иерархия механизмов остаётся неясной; фрагмент отмечает ограниченность доказательств продления жизни усилением ремонта. Полный текст не прочитан. https://pubmed.ncbi.nlm.nih.gov/33911272/
- [6] Cagan A. и соавторы. Somatic mutation rates scale with lifespan across mammals. Nature (2022). . Прочитаны аннотация и библиографическая запись. Секвенирование 208 кишечных крипт от 56 особей 16 видов млекопитающих. Межвидовая связь скорости мутаций с длительностью жизни поддерживает гипотезу, но не устанавливает персональный предел. Методы и приложения полного текста не прочитаны. https://pubmed.ncbi.nlm.nih.gov/35418684/
- [7] Bär C., Blasco M.A. Telomeres and telomerase as therapeutic targets to prevent and treat age-related diseases. F1000Research (2016). . Прочитаны аннотация, подпись к рисунку 1 и декларация интересов. Обзор о теломерах и исследованиях теломеразы. Не доказывает пользу активации теломеразы здоровым людям. У Blasco заявлено участие в компании измерения теломер. Полный текст не прочитан. https://pubmed.ncbi.nlm.nih.gov/27081482/
- [8] Horvath S. DNA methylation age of human tissues and cell types. Genome Biology (2013). . Прочитана структурированная аннотация: Background, Results, Conclusions. Построение многотканевого предиктора на примерно 8000 образцах из 82 наборов данных, 51 типе ткани/клеток; 353 CpG. Предиктор возраста не равен доказанной причине старения. Полный текст и приложения не изучены. https://pubmed.ncbi.nlm.nih.gov/24138928/
- [9] Levine M.E. и соавторы. An epigenetic biomarker of aging for lifespan and healthspan. Aging (2018). . Прочитана аннотация. Разработка DNAm PhenoAge с использованием фенотипического риска. Предсказательная связь с исходами не означает, что снижение показателя само по себе улучшит эти исходы. Полные наборы данных и методы не изучены. https://pubmed.ncbi.nlm.nih.gov/29676998/
- [10] Belsky D.W. и соавторы. DunedinPACE, a DNA methylation biomarker of the pace of aging. eLife (2022). . Прочитаны все подразделы структурированной аннотации и декларация интересов. Динамика 19 показателей на четырёх временных точках за два десятилетия; проверка в пяти дополнительных наборах. Это оценка темпа изменений по алгоритму. Есть лицензированное изобретение; полный текст не прочитан. https://pubmed.ncbi.nlm.nih.gov/35029144/
- [11] Lu Y. и соавторы. Reprogramming to recover youthful epigenetic information and restore vision. Nature (2020). . Прочитаны аннотация и декларация интересов. Экспрессия OSK в ганглиозных клетках сетчатки мышей; изучены метилирование, регенерация аксонов и зрительная функция. Узкая экспериментальная система. Заявлены патенты и коммерческие связи; полный текст не прочитан. https://pubmed.ncbi.nlm.nih.gov/33268865/
- [12] Ocampo A. и соавторы. In Vivo Amelioration of Age-Associated Hallmarks by Partial Reprogramming. Cell (2016). . Прочитаны аннотация и подписи к рисункам 1-7, включая размеры отдельных экспериментальных групп. Продление жизни показано в мышиной модели преждевременного старения; у старых обычных мышей изучалось восстановление после повреждений. Подпись к рисунку 3 описывает тератомы при иной генетической конструкции. Полный текст и приложения не прочитаны. https://pubmed.ncbi.nlm.nih.gov/27984723/
- [13] Meller A., Shalgi R. The aging proteostasis decline: From nematode to human. Experimental Cell Research (2021). . Прочитаны аннотация и индексированные разделы 1, 2, 3, подпись к рисунку 1 и Author credit statement. Обзор связывает изменение стрессового ответа, хроматина, ядерной целостности и протеасом с протеостазом. Человеческие сенесцентные клетки не равны целому организму. Список ссылок целиком не изучен. https://pmc.ncbi.nlm.nih.gov/articles/PMC7868887/
- [14] Rubinsztein D.C., Mariño G., Kroemer G. Autophagy and aging. Cell (2011). . Прочитана аннотация. Обзор об аутофагии и долголетии модельных организмов. Выделяет причинные эксперименты и роль деградации компонентов. Не устанавливает бытовой способ надёжно управлять потоком аутофагии у человека. Полный текст не прочитан. https://pubmed.ncbi.nlm.nih.gov/21884931/
- [15] Pyo J.O. и соавторы. Overexpression of Atg5 in mice activates autophagy and extends lifespan. Nature Communications (2013). . Прочитаны аннотация и подпись к рисунку 1. Генетическая сверхэкспрессия Atg5; прирост медианы жизни мышей 17,2%. Основное сравнение: 65 контрольных и 70 трансгенных мышей. Это генетический эксперимент, а не пищевой режим человека. Полный текст не прочитан. https://pubmed.ncbi.nlm.nih.gov/23939249/
- [16] Mariño G., Fernández A.F., López-Otín C. Autophagy and aging: lessons from progeria models. Advances in Experimental Medicine and Biology (2010). . Прочитана аннотация. Обзор отмечает повышенную базальную аутофагию в отдельных моделях преждевременного старения, в отличие от обычной картины возрастного снижения. Контекст меняет смысл показателя. Полный текст главы не прочитан. https://pubmed.ncbi.nlm.nih.gov/20886757/
- [17] Trifunovic A. и соавторы. Premature ageing in mice expressing defective mitochondrial DNA polymerase. Nature (2004). . Прочитана аннотация. Knock-in мыши с нарушенной корректирующей функцией PolgA: рост мутаций мтДНК и ранние возрастоподобные изменения. Экстремальная искусственная модель не измеряет обычное старение человека. Полный текст не прочитан. https://pubmed.ncbi.nlm.nih.gov/15164064/
- [18] Sies H., Jones D.P. Reactive oxygen species (ROS) as pleiotropic physiological signalling agents. Nature Reviews Molecular Cell Biology (2020). . Прочитана аннотация. Обзор различает физиологическую редокс-сигнализацию и повреждающий избыток окислителей. Даёт основания сомневаться в простой модели тотального устранения ROS. Полный текст не прочитан. https://pubmed.ncbi.nlm.nih.gov/32231263/
- [19] Kenyon C., Chang J., Gensch E., Rudner A., Tabtiang R. A C. elegans mutant that lives twice as long as wild type. Nature (1993). . Прочитана аннотация. Мутации daf-2 увеличивали продолжительность жизни нематод более чем вдвое; требовалась активность daf-16. Доказательство регулируемости фенотипа у модели; не прогноз для млекопитающих. Полный текст не прочитан. https://pubmed.ncbi.nlm.nih.gov/8247153/
- [20] Kenyon C.J. The genetics of ageing. Nature (2010). . Прочитана аннотация. Обзор о генах и эволюционной изменчивости длительности жизни. Краткая аннотация не позволяет детально сравнить все сигнальные пути; использована только для общей рамки регулируемости. Полный текст не прочитан. https://pubmed.ncbi.nlm.nih.gov/20336132/
- [21] Harrison D.E. и соавторы. Rapamycin fed late in life extends lifespan in genetically heterogeneous mice. Nature (2009). . Прочитана аннотация. Три исследовательские площадки, генетически неоднородные мыши; начало в 600 дней. На возрасте 90% смертности прирост 14% у самок и 9% у самцов. Это не медиана и не результат у людей. Полный текст не прочитан. https://pubmed.ncbi.nlm.nih.gov/19587680/
- [22] Baker D.J. и соавторы. Naturally occurring p16(Ink4a)-positive cells shorten healthy lifespan. Nature (2016). . Прочитаны аннотация и подписи к дополнительным рисункам, в том числе 6 и 10. Генетически обусловленное удаление p16-положительных клеток у мышей улучшало ряд исходов. В подписях отмечены отсутствие улучшения отдельных функций и ухудшение заживления при удалении во время раневого ответа. Полный текст не прочитан. https://pubmed.ncbi.nlm.nih.gov/26840489/
- [23] Xu M. и соавторы. Senolytics improve physical function and increase lifespan in old age. Nature Medicine (2018). . Прочитаны аннотация и подпись к рисунку 1. Пересадка сенесцентных клеток мышам и их удаление. Сообщён прирост оставшейся после вмешательства жизни на 36%; исследованы также человеческие тканевые экспланты. Это не 36% всей жизни человека. Полный текст не прочитан. https://pubmed.ncbi.nlm.nih.gov/29988130/
- [24] Roy A.L., Sierra F., Howcroft K. и соавторы. A Blueprint for Characterizing Senescence. Cell (2020). . Прочитаны аннотация и индексированные фрагменты о пяти направлениях исследования, атласах и проверке моделей. Программная научная статья, а не проверка препарата. Подчёркивает неоднородность сенесцентных клеток и необходимость панели маркеров, визуализации и вмешательств для проверки причинности. Полный текст не прочитан. https://pubmed.ncbi.nlm.nih.gov/33128870/
- [25] Бородкина А.В., Дерябин П.И., Гюкова А.А., Никольский Н.Н. "Social Life" of Senescent Cells: What Is SASP and Why Study It?. Acta Naturae (2018). . Прочитаны английская аннотация и подписи к рисункам 1-3; сверена принадлежность к Институту цитологии РАН. Российский обзор о секреторном фенотипе сенесцентных клеток. Русская журнальная страница не открылась из-за цикла перенаправления; её полный текст не прочитан. SASP имеет контекстные защитные и неблагоприятные эффекты. https://pubmed.ncbi.nlm.nih.gov/29713514/
- [26] Conboy I.M. и соавторы. Rejuvenation of aged progenitor cells by exposure to a young systemic environment. Nature (2005). . Прочитана аннотация. Гетерохронный парабиоз мышей и эксперименты с сывороткой/клетками. Изменение системной среды влияло на регенерацию. Не отделяет автоматически все эффекты отдельных факторов и не обосновывает процедуры для человека. Полный текст не прочитан. https://pubmed.ncbi.nlm.nih.gov/15716955/
- [27] Tabula Muris Consortium. A single-cell transcriptomic atlas characterizes ageing tissues in the mouse. Nature (2020). . Прочитана аннотация. Одноклеточный атлас 23 тканей и органов мышей. Отмечены изменения состояния и состава клеток. Наблюдательный атлас не устанавливает причинную роль каждого сигнала; полный текст и исходные данные не изучены. https://pubmed.ncbi.nlm.nih.gov/32669714/
- [28] Franceschi C. и соавторы. Inflamm-aging. An evolutionary perspective on immunosenescence. Annals of the New York Academy of Sciences (2000). . Прочитана аннотация. Историческая концептуальная работа о хроническом воспалительном фоне и способности отвечать на стресс. Авторская теоретическая рамка, не универсальная формула риска. Полный текст не прочитан. https://pubmed.ncbi.nlm.nih.gov/10911963/
- [29] Fulop T., Larbi A., Dupuis G. и соавторы. Immunosenescence and Inflamm-Aging As Two Sides of the Same Coin: Friends or Foes?. Frontiers in Immunology (2018). . Прочитаны аннотация и индексированные разделы об иммунных изменениях, связи с inflamm-aging и значении этих изменений. Обзор обсуждает перестройку и адаптацию иммунитета, двусторонние связи с воспалением и неопределённость оптимальных уровней ответа. Не все изменения однозначно вредны. Остальной полный текст не прочитан. https://www.frontiersin.org/journals/immunology/articles/10.3389/fimmu.2017.01960/full
- [30] Gulen M.F. и соавторы. cGAS-STING drives ageing-related inflammation and neurodegeneration. Nature (2023). . Прочитана аннотация. Мыши, человеческие клетки и ткани: cGAS-STING связывает цитозольную ДНК с воспалением. Изучены микроглия, тканевые и функциональные исходы. Результат экспериментального блокирования не является подтверждённой бытовой стратегией. Полный текст не прочитан. https://pubmed.ncbi.nlm.nih.gov/37532932/
- [31] Wilmanski T. и соавторы. Gut microbiome pattern reflects healthy ageing and predicts survival in humans. Nature Metabolism (2021). . Прочитаны аннотация и подпись к рисунку 1 о структуре когорт. Три независимые когорты, более 9000 человек; в пожилой подгруппе изучено выживание за четыре года. Уникальность состава связана с исходами; наблюдение не доказывает пользу искусственного изменения состава. Полный текст не прочитан. https://pubmed.ncbi.nlm.nih.gov/33619379/
- [32] Claesson M.J. и соавторы. Gut microbiota composition correlates with diet and health in the elderly. Nature (2012). . Прочитана аннотация. Наблюдение у 178 пожилых участников; состав микробиоты связан с рационом, местом проживания и состоянием. Возможны смешение факторов и обратная причинность. Полный текст не прочитан. https://pubmed.ncbi.nlm.nih.gov/22797518/
- [33] Waziry R., Ryan C.P. и соавторы. Effect of long-term caloric restriction on DNA methylation measures of biological aging in healthy adults from the CALERIE trial. Nature Aging (2023). . Прочитаны Abstract, Main, ограничения и Methods до подраздела Statistics and reproducibility; приложения не изучены. Вторичный анализ: 220 здоровых взрослых без ожирения (мужчины 21-50 лет, женщины до менопаузы 21-47 лет); 197 с данными метилирования. За два года небольшой эффект DunedinPACE; значимых эффектов PC PhenoAge/PC GrimAge нет. Продление жизни не проверено. https://www.nature.com/articles/s43587-022-00357-y
- [34] Shen X., Wang C., Zhou X. и соавторы. Nonlinear dynamics of multi-omics profiles during human aging. Nature Aging (2024). . Прочитаны аннотация, индексированные фрагменты введения и редакционное уведомление от 15 июля 2026 года. 108 участников; медиана наблюдения 1,7 года. Надёжность части анализов пиков около определённых возрастов поставлена под вопрос редакцией. Использовано как пример спорной интерпретации, не как подтверждение универсальных скачков. Полный текст и приложения не прочитаны. https://www.nature.com/articles/s43587-024-00692-2
- [35] Ryan C.P. и соавторы. The CALERIE Genomic Data Resource. Nature Aging (2025 (онлайн 2024)). . Прочитаны аннотация ранней версии и библиографическая запись опубликованной журнальной версии. Описание молекулярного ресурса испытания: 218 участников, 2327 образцов разных тканей и временных точек. Число образцов не равно числу людей. Новая база не является независимым повторением испытания. Полный журнальный текст не прочитан. https://pubmed.ncbi.nlm.nih.gov/39672986/
- [36] Kuo P.-L., Moore A.Z., Tanaka T. и соавторы. Longitudinal changes in epigenetic clocks predict survival in the InCHIANTI cohort. Nature Aging (2026). . Прочитаны аннотация, авторство и библиографическая запись. 699 взрослых, наблюдение до 24 лет. Более быстрое изменение ряда часов связано со смертностью с учётом исходного возраста и иных факторов. Наблюдательная связь не подтверждает пользу снижения показателя вмешательством. Полный текст не прочитан. https://pubmed.ncbi.nlm.nih.gov/41826710/
- [37] Lemaître J.-F., Moorad J., Gaillard J.-M., Maklakov A.A., Nussey D.H. A unified framework for evolutionary genetic and physiological theories of aging. PLOS Biology (2024). . Прочитаны Abstract, Introduction, Evolutionary theory of aging: A hierarchical framework и индексированный раздел The developmental theory of aging. Теоретическое эссе связывает эволюционные и физиологические уровни. Обсуждение disposable soma и developmental theory не является доказательством единственной причины. Остальные разделы и ссылки полностью не изучены. https://journals.plos.org/plosbiology/article?id=10.1371/journal.pbio.3002513
- [38] Skowronska-Krawczyk D. Hallmarks of Aging: Causes and Consequences. Aging Biology (2023). . Прочитаны аннотация и индексированный вводный фрагмент. Комментарий предлагает отделять ранние молекулярные события от клеточных и тканевых ответов. Авторская причинная схема служит предметом дискуссии, а не универсально проверенной моделью. Полный текст не прочитан. https://pubmed.ncbi.nlm.nih.gov/38274125/