Почему работающие мышцы становятся крупным потребителем доступного топлива
Доступно в полной версии:
Как пользоваться курсом
Этот материал объясняет механизм от молекулы до повседневной ситуации. Сначала собрана система ATP-спроса и доставки, затем разобраны углеводы, жиры и лактат, после — исследования, сценарии и границы интерпретации. Ссылки вида [7] ведут к нумерованному списку источников в конце.
Мышца как переключаемая электростанция
В покое скелетная мышца — не «выключенный мотор», но её энергетический поток сравнительно невелик. Когда нервная система рекрутирует двигательные единицы, миллионы миозиновых головок начинают циклически взаимодействовать с актином, кальциевые насосы возвращают Ca2+ в саркоплазматический ретикулум, а Na+/K+-АТФаза восстанавливает мембранные градиенты. Все эти операции оплачиваются гидролизом ATP. Поэтому крупным потребителем становится не мышца вообще, а активированная масса волокон в конкретный момент [1, 28].
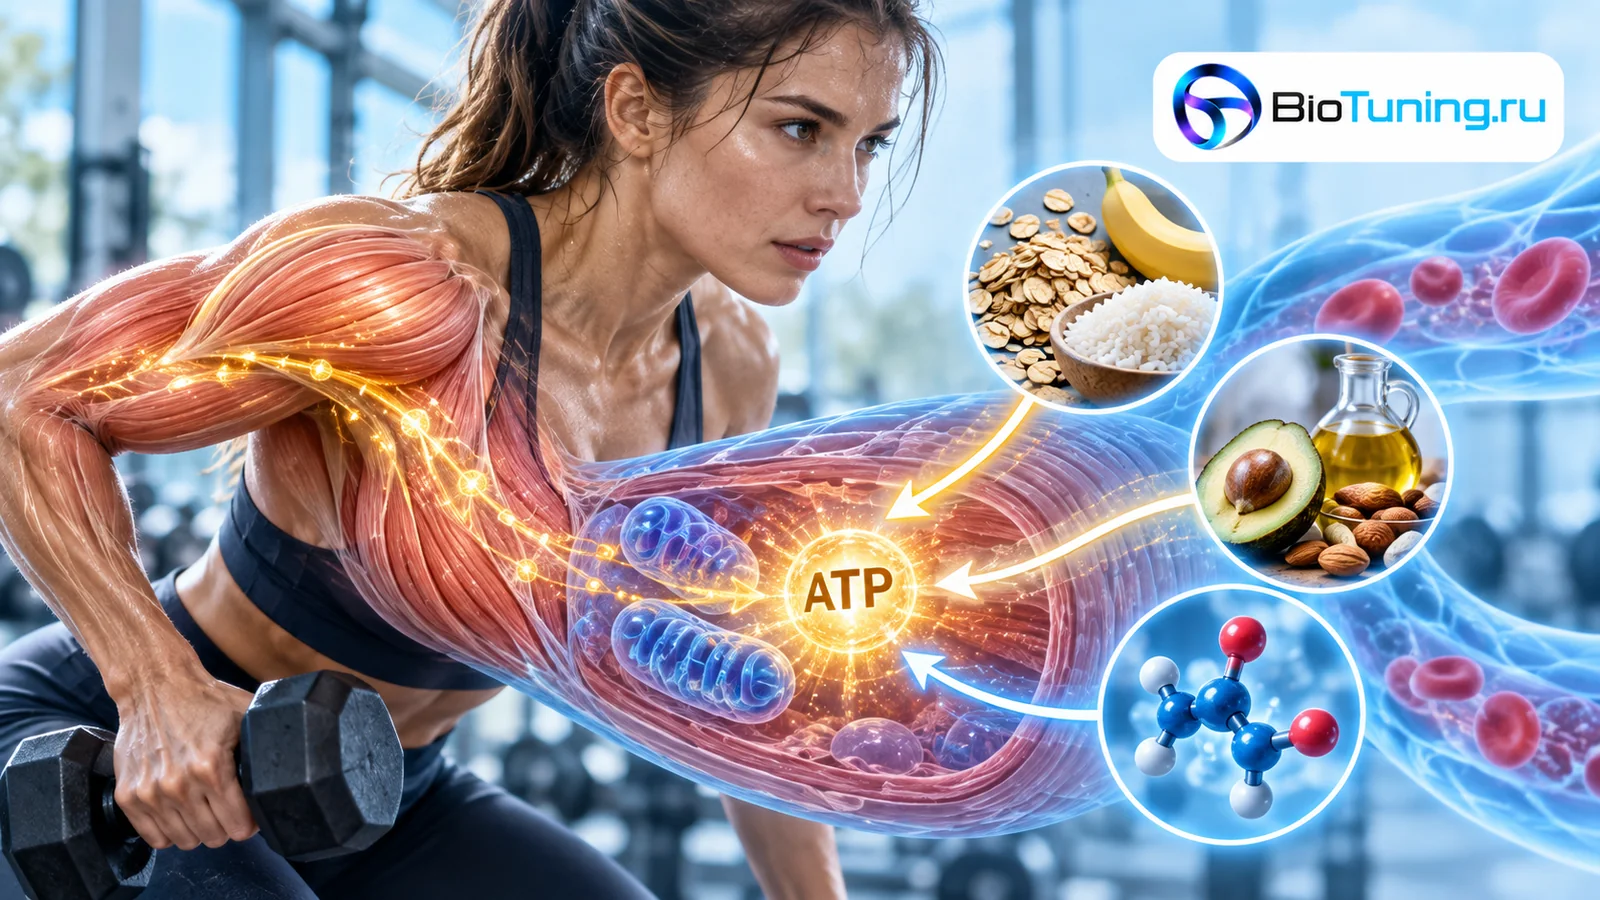
Фраза «мышца сжигает сахар» слишком груба. Сначала ATP отдаёт фосфат и свободную энергию; затем фосфокреатин, гликолиз и окислительное фосфорилирование заново собирают ATP из ADP. Концентрация ATP меняется намного меньше, чем скорость его оборота: система защищает небольшой непосредственный пул, многократно перезаряжая его. Метаболический поток поэтому важнее фотографии концентраций [7, 29].
Главная идея курса: сокращение одновременно открывает спрос, расширяет доставку и перенастраивает входные ворота. Растёт кровоток, увеличивается извлечение кислорода и субстратов, GLUT4 перемещается к мембране, ферменты ускоряют переработку, а печень и жировая ткань поддерживают циркулирующий запас. Именно совпадение этих процессов превращает работающую мышцу в крупного покупателя доступного топлива [4-6,24-27].
Это не означает, что вся пища после прогулки «уйдёт в мышцы», что одна тренировка отменяет энергетический баланс или что падение глюкозы обязательно. Печень может повысить выпуск глюкозы, кишечник продолжает всасывание, другие ткани тоже потребляют и производят субстраты. Концентрация в крови — результат нескольких больших потоков, а не прямой счётчик мышечного расхода [3, 24, 33].
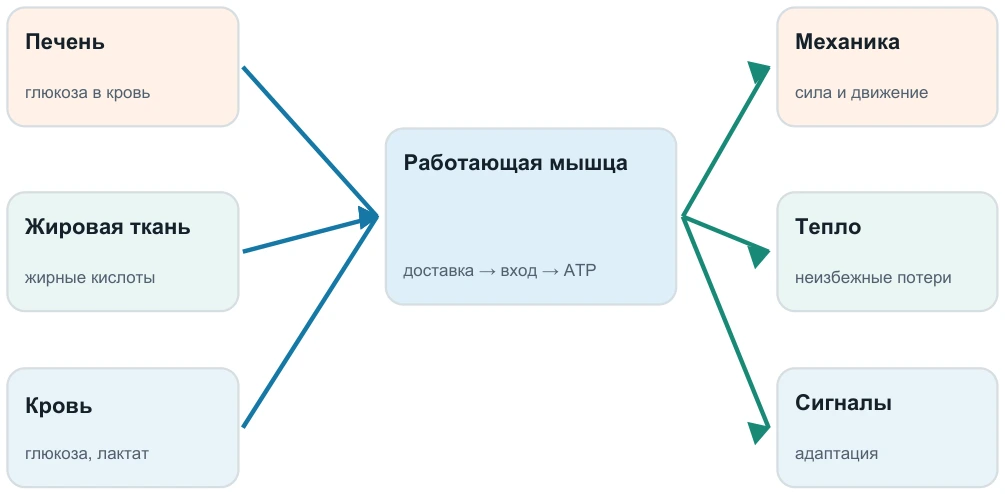
Рисунок 1. Авторская карта потоков. Стрелки показывают маршруты, а не количественные данные.
Почему ATP — валюта, а не склад
ATP удобен как непосредственный посредник: его гидролиз связан и с механическим циклом миозина, и с работой насосов. Но держать огромный запас ATP невыгодно осмотически и химически. Мышца хранит энергию в иных формах — фосфокреатине, гликогене, внутримышечных липидах — и использует циркулирующие глюкозу, жирные кислоты и лактат [1, 28, 30].
В первые секунды работа резко ускоряет потребление, тогда как доставка кислорода и митохондриальный поток набирают скорость не мгновенно. Фосфокреатин сглаживает рассогласование. Затем больший вклад берут гликолиз и окисление. Это не эстафета с выключением предыдущего участника: системы работают параллельно, но их доли меняются [1, 7, 29].
Скорость укорочения, сила, частота сокращений и необходимость стабилизации суставов меняют стоимость одинакового внешнего результата. В опыте с одноногими разгибаниями одинаковая внешняя мощность при 60 и 100 сокращениях в минуту сопровождалась различиями мышечного кислородного и энергетического оборота [29]. Внешние ватты не описывают полностью внутреннюю работу.
Часть энергии неизбежно уходит в тепло. «Эффективность» мышцы — не моральное качество и не постоянная черта человека: она зависит от движения, навыка, скорости и типа сокращения. Экономизация после тренировки может снижать расход на привычной мощности, даже если общая способность выполнять работу возрастает.
От команды нерва к счёту за энергию
Двигательная единица объединяет мотонейрон и волокна, которыми он управляет. При лёгкой задаче рекрутируется небольшая доля доступной массы; по мере роста требуемой силы подключаются дополнительные и более быстрые единицы, а активные единицы повышают частоту импульсации. Поэтому расход масштабируется не просто с массой мышцы, а с тем, какая её часть и как часто включена.
Волокна типа I обычно имеют более развитую окислительную аппаратуру и подходят для длительного потока умеренной мощности. Волокна типа II способны на высокий темп ATP-оборота, имеют больше гликолитических возможностей и локальных запасов гликогена и фосфокреатина. Реальные мышцы мозаичны, а человеческие волокна существуют в континууме фенотипов [1].
Изометрическое удержание тяжёлого предмета производит мало внешней механической работы, но требует непрерывного поддержания силы и ионных градиентов. Динамическая работа может стоить иначе: при укорочении меняется скорость цикла мостиков. Поэтому шаги, килограммы на штанге или минуты планки нельзя свести к одной универсальной цене [28, 29].
Практический вывод не в том, чтобы искать «самый прожорливый» режим, а в понимании масштаба: крупная активная мышечная масса, длительность и интенсивность совместно определяют запрос. Мелкая работа кистью и подъём по лестнице по-разному перераспределяют кровоток и субстраты даже при одинаковом субъективном усилии.
Доставка: кровоток превращает запас в доступность
Топливо, присутствующее в организме, ещё не обязательно доступно конкретному волокну. Глюкоза и жирные кислоты должны быть доставлены кровью, пройти микроциркуляцию и интерстиций. Кислород нужен для устойчивого окисления. При начале работы локальный кровоток начинает увеличиваться за секунды, а артериолы и капиллярные сети перестраивают перфузию [26, 27].
Классический эксперимент Andersen и Saltin с изолированной работой разгибателей колена у пяти человек оценил максимальную перфузию примерно в 2.5 л·кг-1·мин-1, а локальное потребление кислорода — около 0.35 л·кг-1·мин-1 [5]. Малый образец и специализированная модель не дают «нормы для всех», но показывают физический масштаб локального перераспределения.
В обзоре человеческих измерений приведён полезный расчёт: в покое нога может забирать лишь 15-40 мкмоль глюкозы в минуту, тогда как при тяжёлой работе
оценка достигает 2100-4000 мкмоль/мин. Это сочетание кровотока 7-10 л/мин и большей артериовенозной разницы [4]. Речь о кратном изменении потока, а не обязательном падении концентрации крови.
Организм одновременно должен сохранить артериальное давление, снабжение мозга и сердца и отвод тепла. Поэтому максимальная локальная вазодилатация не может безгранично происходить во всех мышцах сразу. Симпатическая регуляция и локальные метаболиты договариваются о компромиссе [26].
Источники и Список литературы
- 1. Smith JAB; Murach KA; Dyar KA; Zierath JR (2023). Exercise metabolism and adaptation in skeletal muscle. DOI: 10.1038/s41580-023-00606-x; PMID: 37225892. Использовано: К концу нагрузки захват глюкозы мышцей может достигать примерно 15-кратного уровня покоя при ~50% VO2max и около 50-кратного при исчерпывающей нагрузке; выбор топлива зависит от рекрутирования и интенсивности. https://pmc.ncbi.nlm.nih.gov/articles/PMC10527431/
- 2. Richter EA; Derave W; Wojtaszewski JFP (2001). Glucose, exercise and insulin: emerging concepts. DOI: 10.1111/j.1469-7793.2001.t01-2-00313.x; PMID: 11533125. Использовано: Сокращение увеличивает GLUT4 на сарколемме и T-трубочках; доставка, транспорт и метаболизм совместно определяют захват глюкозы. https://pmc.ncbi.nlm.nih.gov/articles/PMC2278791/
- 3. Evans PL; McMillin SL; Weyrauch LA; Witczak CA (2019). Regulation of Skeletal Muscle Glucose Transport and Glucose Metabolism by Exercise Training. DOI: 10.3390/nu11102432; PMID: 31614762. Использовано: Тренировка повышает содержание GLUT4; в обзоре диапазон человеческих исследований 20-70%, но эффекты зависят от протокола. https://pmc.ncbi.nlm.nih.gov/articles/PMC6835691/
- 4. Richter EA (2021). Is GLUT4 translocation the answer to exercise-stimulated muscle glucose uptake?. DOI: 10.1152/ajpendo.00503.2020; PMID: 33166188. Использовано: Захват — произведение кровотока на артериовенозную разницу; при тяжёлой работе вклад доставки огромен. https://pmc.ncbi.nlm.nih.gov/articles/PMC8260367/
- 5. Andersen P; Saltin B (1985). Maximal perfusion of skeletal muscle in man. DOI: 10.1113/jphysiol.1985.sp015794; PMID: 4057091. Использовано: Одноногая разгибательная работа демонстрирует экстремальный локальный кровоток и потребление кислорода. https://pubmed.ncbi.nlm.nih.gov/4057091/
- 6. Katz A; Broberg S; Sahlin K; Wahren J (1986). Leg glucose uptake during maximal dynamic exercise in humans. DOI: 10.1152/ajpendo.1986.251.1.E65; PMID: 3728665. Использовано: Захват глюкозы ногой растёт с интенсивностью и во время максимальной работы продолжает увеличиваться до утомления. https://pubmed.ncbi.nlm.nih.gov/3728665/
- 7. van Loon LJC; Greenhaff PL; Constantin-Teodosiu D; Saris WHM; Wagenmakers AJM (2001). The effects of increasing exercise intensity on muscle fuel utilisation in humans. DOI: 10.1111/j.1469-7793.2001.00295.x; PMID: 11579177. Использовано: С ростом интенсивности повышается окисление мышечного гликогена и плазменной глюкозы, а пик общего окисления жира находится в средней зоне. https://pmc.ncbi.nlm.nih.gov/articles/PMC2278845/
- 8. Romijn JA; Coyle EF; Sidossis LS; Gastaldelli A; Horowitz JF; Endert E; Wolfe RR (1993). Regulation of endogenous fat and carbohydrate metabolism in relation to exercise intensity and duration. DOI: 10.1152/ajpendo.1993.265.3.E380; PMID: 8214047. Использовано: Плазменная глюкоза и мышечный гликоген растут как источники с интенсивностью; при длительной средней работе вклад плазменных субстратов увеличивается со временем. https://pubmed.ncbi.nlm.nih.gov/8214047/
- 9. McLellan TM; Jacobs I (1991). Muscle glycogen utilization and the expression of relative exercise intensity. DOI: 10.1055/s-2007-1024649; PMID: 2030054. Использовано: Межиндивидуальный разброс использования гликогена велик и не сводится к одному проценту VO2max. https://pubmed.ncbi.nlm.nih.gov/2030054/
- 10. Nielsen J; Holmberg HC; Schrøder HD; Saltin B; Ortenblad N (2011). Human skeletal muscle glycogen utilization in exhaustive exercise: role of subcellular localization and fibre type. DOI: 10.1113/jphysiol.2010.204487; PMID: 21486810. Использовано: Гликоген распределён по субклеточным пулам; внутримофибриллярный пул истощается сильнее. https://pubmed.ncbi.nlm.nih.gov/21486810/
- 11. Adeva-Andany MM; González-Lucán M; Donapetry-García C; Fernández-Fernández C; Ameneiros-Rodríguez E (2016). Glycogen metabolism in humans. DOI: 10.1016/j.bbacli.2016.02.001; PMID: 27051594. Использовано: Истощение локально для работавших мышц; после работы активированная мышца быстрее восстанавливает запас. https://pmc.ncbi.nlm.nih.gov/articles/PMC4802397/
- 12. Hearris MA; Hammond KM; Fell JM; Morton JP (2018). Regulation of Muscle Glycogen Metabolism during Exercise: Implications for Endurance Performance and Training Adaptations. DOI: 10.3390/nu10030298; PMID: 29498691. Использовано: Гликоген — не только склад топлива, но и регулятор клеточных сигналов; расход зависит от интенсивности, длительности, тренированности и доступности субстрата. https://pubmed.ncbi.nlm.nih.gov/29498691/
- 13. Sundberg CW; Fitts RH (2019). Bioenergetic basis of skeletal muscle fatigue. DOI: 10.1016/j.cophys.2019.05.004; PMID: 31342000. Использовано: При высокой интенсивности митохондриальный синтез может отставать от ATP-спроса; Pi и H+ совместно ухудшают силу, кальциевую чувствительность и высвобождение Ca2+. https://pmc.ncbi.nlm.nih.gov/articles/PMC6656370/
- 14. Perry CGR; Hawley JA (2018). Molecular Basis of Exercise-Induced Skeletal Muscle Mitochondrial Biogenesis: Historical Advances, Current Knowledge, and Future Challenges. DOI: 10.1101/cshperspect.a029686; PMID: 28507194. Использовано: Сигналы от сокращения перестраивают митохондриальную сеть; PGC-1α важен, но биологическая избыточность не позволяет называть его единственным переключателем. https://pmc.ncbi.nlm.nih.gov/articles/PMC6120690/
- 15. Egan B; Carson BP; Garcia-Roves PM; Chibalin AV; Sarsfield FM; Barron N; McCaffrey N; Moyna NM; Zierath JR; O'Gorman DJ (2010). Exercise intensity-dependent regulation of peroxisome proliferator-activated receptor coactivator-1 mRNA abundance is associated with differential activation of upstream signalling kinases in human skeletal muscle. DOI: 10.1113/jphysiol.2010.188011; PMID: 20308248. Использовано: При равной энергозатрате более интенсивная сессия вызвала более сильный транскрипционный сигнал. https://pubmed.ncbi.nlm.nih.gov/20308248/
- 16. Little JP; Safdar A; Wilkin GP; Tarnopolsky MA; Gibala MJ (2010). A practical model of low-volume high-intensity interval training induces mitochondrial biogenesis in human skeletal muscle: potential mechanisms. DOI: 10.1113/jphysiol.2009.181743; PMID: 20100740. Использовано: Небольшой объём интервальной работы изменил маркеры митохондрий и GLUT4, но это не означает универсального превосходства протокола. https://pubmed.ncbi.nlm.nih.gov/20100740/
- 17. O'Neill HM (2013). AMPK and Exercise: Glucose Uptake and Insulin Sensitivity. DOI: 10.4093/dmj.2013.37.1.1; PMID: 23441028. Использовано: AMPK участвует в ответе, но путь сокращения многоканален и не сводится к одной киназе. https://pmc.ncbi.nlm.nih.gov/articles/PMC3579147/
- 18. Treebak JT; Pehmøller C; Kristensen JM; Kjøbsted R; Birk JB; Schjerling P; Richter EA; Goodyear LJ; Wojtaszewski JFP (2014). Acute exercise and physiological insulin induce distinct phosphorylation signatures on TBC1D1 and TBC1D4 proteins in human skeletal muscle. DOI: 10.1113/jphysiol.2013.266338; PMID: 24247980. Использовано: Инсулин и работа оставляют различающиеся подписи на TBC1D1/4, подтверждая частично независимые входы к транспорту глюкозы. https://pubmed.ncbi.nlm.nih.gov/24247980/
- 19. Treebak JT; Frøsig C; Pehmøller C; Chen S; Maarbjerg SJ; Brandt N; MacKintosh C; Zierath JR; Hardie DG; Kiens B; Richter EA; Pilegaard H; Wojtaszewski JFP (2009). Potential role of TBC1D4 in enhanced post-exercise insulin action in human skeletal muscle. DOI: 10.1007/s00125-009-1294-y; PMID: 19252894. Использовано: Через 4 часа после одноногой работы инсулин стимулировал больший захват в работавшей ноге. https://pubmed.ncbi.nlm.nih.gov/19252894/
- 20. Sjøberg KA; Frøsig C; Kjøbsted R; Sylow L; Kleinert M; Betik AC; Shaw CS; Kiens B; Wojtaszewski JFP; Rattigan S; Richter EA; McConell GK (2017). Exercise Increases Human Skeletal Muscle Insulin Sensitivity via Coordinated Increases in Microvascular Perfusion and Molecular Signaling. DOI: 10.2337/db16-1327; PMID: 28292969. Использовано: После работы усиление доставки и внутриклеточной обработки координируются, а не конкурируют как единственная причина. https://pubmed.ncbi.nlm.nih.gov/28292969/
- 21. Bradley H; Shaw CS; Bendtsen C; Worthington PL; Wilson OJ; Strauss JA; Wallis GA; Turner AM; Wagenmakers AJM (2015). Visualization and quantitation of GLUT4 translocation in human skeletal muscle following glucose ingestion and exercise. DOI: 10.14814/phy2.12375; PMID: 25969463. Использовано: Иммунофлуоресценция биопсий показала перемещение GLUT4 к мембране после нагрузки. https://pubmed.ncbi.nlm.nih.gov/25969463/
- 22. Kristiansen S; Hargreaves M; Richter EA (1996). Exercise-induced increase in glucose transport, GLUT-4, and VAMP-2 in plasma membrane from human muscle. DOI: 10.1152/ajpendo.1996.270.1.E197; PMID: 8772493. Использовано: Везикулы из биопсий подтвердили рост мембранного GLUT4 и транспорта после работы. https://pubmed.ncbi.nlm.nih.gov/8772493/
- 23. Houmard JA; Hickey MS; Tyndall GL; Gavigan KE; Dohm GL (1995). Seven days of exercise increase GLUT-4 protein content in human skeletal muscle. DOI: 10.1152/jappl.1995.79.6.1936; PMID: 8847256. Использовано: Даже короткий тренировочный блок способен увеличить содержание GLUT4, но малый однополый образец ограничивает переносимость. https://pubmed.ncbi.nlm.nih.gov/8847256/
- 24. Wasserman DH; Kang L; Ayala JE; Fueger PT; Lee-Young RS (2011). The physiological regulation of glucose flux into muscle in vivo. DOI: 10.1242/jeb.048041; PMID: 21177945. Использовано: Доставка, мембранный транспорт и фосфорилирование образуют распределённый контроль; одна только доставка не воспроизводит ответ нагрузки. https://pmc.ncbi.nlm.nih.gov/articles/PMC3008632/
- 25. Malone JJ; Hulton AT; MacLaren DPM (2021). Exogenous carbohydrate and regulation of muscle carbohydrate utilisation during exercise. DOI: 10.1007/s00421-021-04609-4; PMID: 33544230. Использовано: Рост кровотока — крупный количественный вклад в усиление захвата; капилляры, GLUT4 и гексокиназа остаются последовательными барьерами. https://pmc.ncbi.nlm.nih.gov/articles/PMC8064975/
- 26. Joyner MJ; Casey DP (2015). Regulation of increased blood flow (hyperemia) to muscles during exercise: a hierarchy of competing physiological needs. DOI: 10.1152/physrev.00035.2013; PMID: 25834232. Использовано: Локальная вазодилатация должна сосуществовать с поддержанием давления и ограниченным сердечным выбросом. https://pmc.ncbi.nlm.nih.gov/articles/PMC4551211/
- 27. Sarelius I; Pohl U (2010). Control of muscle blood flow during exercise: local factors and integrative mechanisms. DOI: 10.1111/j.1748-1716.2010.02129.x; PMID: 20353492. Использовано: Кровоток увеличивается быстро после начала работы; микроциркуляция рекрутируется сетями, а не отдельными изолированными капиллярами. https://pmc.ncbi.nlm.nih.gov/articles/PMC3157959/
- 28. Barclay CJ (2023). A century of exercise physiology: key concepts in muscle energetics. DOI: 10.1007/s00421-022-05070-7; PMID: 36271943. Использовано: ATP гидролизуется поперечными мостиками и насосами; механическая нагрузка меняет скорость цикла и тепловыделение. https://pmc.ncbi.nlm.nih.gov/articles/PMC9813177/
- 29. Ferguson RA; Ball D; Krustrup P; Aagaard P; Kjaer M; Sargeant AJ; Hellsten Y; Bangsbo J (2001). Muscle oxygen uptake and energy turnover during dynamic exercise at different contraction frequencies in humans. DOI: 10.1111/j.1469-7793.2001.00261.x; PMID: 11579174. Использовано: При одинаковой внешней мощности частота сокращений меняет внутреннюю стоимость работы и кислородный запрос. https://pubmed.ncbi.nlm.nih.gov/11579174/
- 30. Brooks GA (2009). Cell-cell and intracellular lactate shuttles. DOI: 10.1113/jphysiol.2009.178350; PMID: 19805739. Использовано: Лактат непрерывно образуется и окисляется при наличии кислорода; он переносит углерод между клетками и органами. https://pmc.ncbi.nlm.nih.gov/articles/PMC2805372/
- 31. Cheng AJ; Place N; Westerblad H (2018). Molecular Basis for Exercise-Induced Fatigue: The Importance of Strictly Controlled Cellular Ca2+ Handling. DOI: 10.1101/cshperspect.a029710; PMID: 28432118. Использовано: Связь низкого гликогена и утомления воспроизводима, но причинный механизм включает локализацию запасов и кальциевый обмен и не исчерпывается «пустым баком». https://pmc.ncbi.nlm.nih.gov/articles/PMC5793735/
- 32. Юнь Ю.; Дьякова Е. Ю.; Цюй С. (2025). Сетевой мета-анализ эффективности различных программ физических упражнений в отношении метаболизма и воспаления скелетных мышц при сахарном диабете 2 типа. DOI: 10.24412/2588-0500-2025_09_03_30. Использовано: Сравнение типов нагрузки по молекулярным исходам основано преимущественно на диабетических моделях животных; прямой перенос на повседневную активность человека ограничен. https://cyberleninka.ru/article/n/setevoy-meta-analiz-effektivnosti-razlichnyh-programm-fizicheskih-uprazhneniy-v-otnoshenii-metabolizma-i-vospaleniya-skeletnyh
- 33. Шварц В. Я.; Колберг Б. (2011). Воспаление жировой ткани (часть 5). Взаимосвязь с физиологической инсулинорезистентностью. DOI/PMID не присвоены. Использовано: Российский обзор описывает координацию мышц, печени и жировой ткани при продолжительной активности. https://www.mediasphera.ru/issues/problemy-endokrinologii/2011/6/030375-96602011612
- 34. Ройтберг Г. Е.; Сластникова И. Д.; Дорош Ж. В.; Дмитриева О. Ю. (2016). Влияние физической нагрузки на основные компоненты метаболического синдрома. DOI: 10.17116/profmed201619328-33. Использовано: Эффекты нагрузки зависят от исходной популяции и программы; клинические исходы нельзя автоматически переносить на здоровых. https://www.mediasphera.ru/issues/profilakticheskaya-meditsina/2016/3/1230549482016031028
- 35. Мкртумян А. М.; Маркова Т. Н.; Мищенко Н. К. (2017). Роль почек в гомеостазе глюкозы. DOI: 10.14341/probl2017636385-391. Использовано: Мышечный гликоген используется локально: глюкозо-6-фосфат не экспортируется мышцей как свободная глюкоза. https://www.mediasphera.ru/issues/problemy-endokrinologii/2017/6/1037596602017061385
- 36. Reynolds AN; Venn BJ (2018). The Timing of Activity after Eating Affects the Glycaemic Response of Healthy Adults: A Randomised Controlled Trial. DOI: 10.3390/nu10111743; PMID: 30428521. Использовано: Короткая лёгкая активность после еды может изменить кривую глюкозы, но эффект времени неоднозначен и не равен лечению. https://pmc.ncbi.nlm.nih.gov/articles/PMC6267507/
- 37. Hashimoto K; Dora K; Murakami Y; Matsumura T; Yuuki IW; Yang S; Hashimoto T (2025). Positive impact of a 10-min walk immediately after glucose intake on postprandial glucose levels. DOI: 10.1038/s41598-025-07312-y; PMID: 40594496. Использовано: В малом перекрёстном исследовании 10 минут ходьбы после глюкозной нагрузки уменьшали среднюю и пиковую гликемию. https://pmc.ncbi.nlm.nih.gov/articles/PMC12216464/
- 38. World Health Organization (2020). WHO Guidelines on physical activity and sedentary behaviour. ISBN: 9789240015128. Использовано: Для здоровья важны регулярность, умеренная/интенсивная аэробная активность и укрепление основных мышечных групп; начинать следует с малого. https://www.who.int/publications/i/item/9789240015128
- [39] Herzig S. et al. (2012). Identification and functional expression of the mitochondrial pyruvate carrier. Science, 337:93-96. DOI: 10.1126/science.1218530. https://pubmed.ncbi.nlm.nih.gov/22628554/ транспорт через внутреннюю мембрану обеспечивает MPC; это не функция PDH.
- [40] Kindig C. A.; Richardson T. E.; Poole D. C. (2002). Skeletal muscle capillary hemodynamics from rest to contractions: implications for oxygen transfer. J Appl Physiol, 92:2513-2520. DOI: 10.1152/japplphysiol.01222.2001. https://pubmed.ncbi.nlm.nih.gov/12015367/ модель мышцы крысы, n=4; рост скорости эритроцитов. Это не человеческая норма.
- [41] Steenberg D. E. et al. (2019). Exercise training reduces the insulin-sensitizing effect of a single bout of exercise in human skeletal muscle. J Physiol, 597:89-103. DOI: 10.1113/JP276735. https://doi.org/10.1113/JP276735 девять мужчин, 12 недель велотренировок обеими ногами; одноногий острый тест.
- [42] Frayn K. N. (1983). Calculation of substrate oxidation rates in vivo from gaseous exchange. J Appl Physiol, 55:628-634. DOI: 10.1152/jappl.1983.55.2.628. https://doi.org/10.1152/jappl.1983.55.2.628 допущения расчёта по газообмену и ошибки при изменении метаболических потоков. Юридическая оговорка персональная инструкция. Решения, затрагивающие здоровье, требуют консультации квалифицированного специалиста с учётом вашей ситуации.