Метаболическая гибкость
Доступно в полной версии:
Как читать этот курс
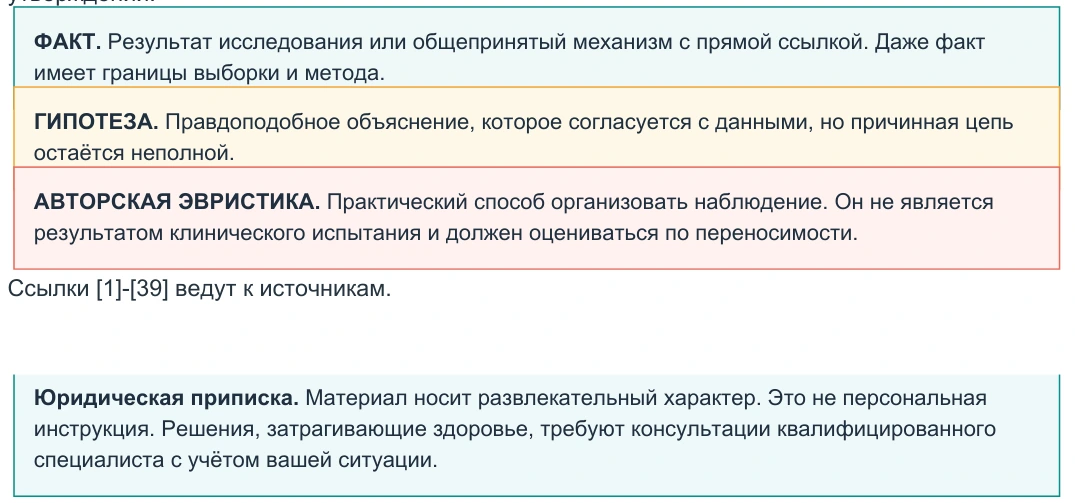
Курс объясняет физиологию повседневных переключений топлива. Он не оценивает здоровье по одному числу и не предлагает лечебных протоколов. В тексте используются три уровня утверждений:
О терминах. В цитируемых работах RQ нередко обозначает результат измерения газообмена всего тела. Строгое название лёгочного показателя — RER. Здесь сохранена терминология публикаций, а различие методов разобрано в разделе 4 и глоссарии.
Не «жиросжигание», а управление переходами
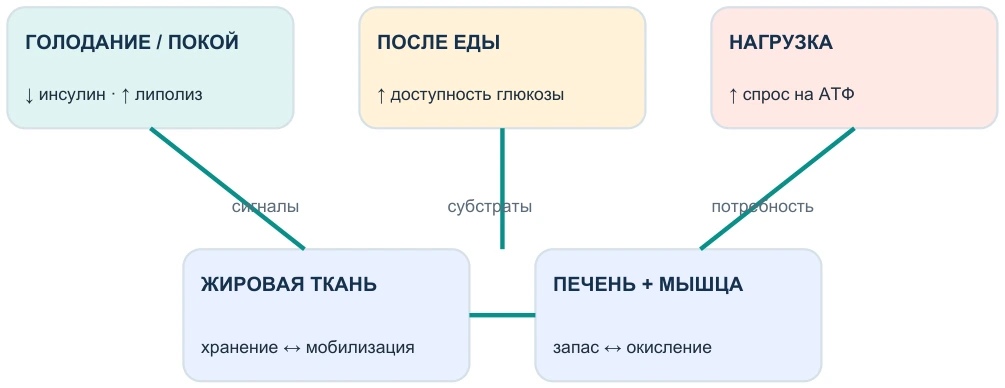
Гибкость — согласование доступности, хранения и спроса во времени
Схема 1. Гибкость возникает из согласования сигналов, субстратов и потребности; это не один молекулярный переключатель.
1.1. Рабочее определение
Метаболическая гибкость — способность организма менять потоки топлива в ответ на изменение его доступности и потребности в энергии. После ночного перерыва возрастает роль жирных кислот; после углеводсодержащей еды — захват, окисление и запасание глюкозы; при ускорении работы мышцы резко возрастает общий поток АТФ, а доля углеводов обычно увеличивается с интенсивностью. Суть не в вечном предпочтении одного топлива, а в своевременном выборе и согласовании нескольких органов. Поэтому низкий RQ может быть уместен утром натощак и совсем не обязан быть «лучше» после еды. [2] [4]
В повседневной жизни переключения происходят непрерывно и накладываются друг на друга. Еда меняет гормональные сигналы и доступность субстратов; движение меняет спрос; сон и циркадная фаза меняют фон; предшествующий рацион определяет заполнение гликогена. Два одинаковых завтрака могут давать разную кривую, если накануне один человек тренировался, а другой долго сидел. Метаболизм не выполняет одну команду — он решает задачу распределения потоков во времени.
1.2. Четыре свойства переключения
Физиологическая цель не в максимальной амплитуде при любом обстоятельстве. При смешанном приёме пищи нормальна одновременная утилизация нескольких субстратов. Во время очень интенсивной работы преимущество углеводов функционально: они быстрее поддерживают высокий поток АТФ. А при длительной умеренной работе вклад жирных кислот помогает экономить ограниченный гликоген. «Правильность» реакции определяется задачей, а не моральной иерархией топлива.
Карта топлива: от запасов до АТФ
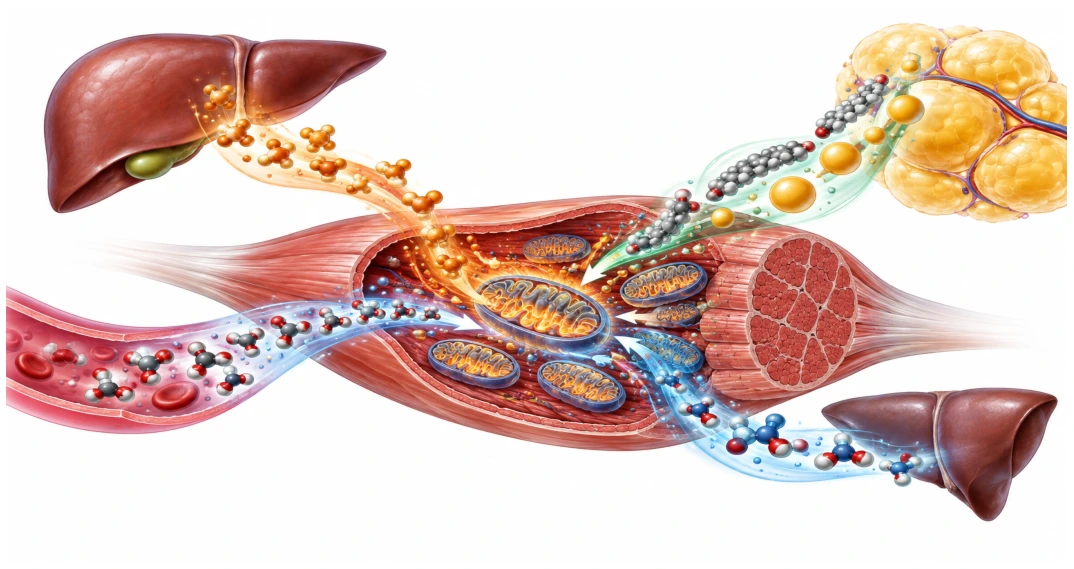
Оригинальная иллюстрация 1. Мышца как энергетический узел между печенью, жировой тканью и кровотоком. Художественная визуализация не отображает масштабы молекул.
2.1. Углеводы, жиры, кетоновые тела и аминокислоты
Глюкоза может поступить из пищи, печёночного гликогена или синтезироваться из неуглеводных предшественников. В мышце собственный гликоген используется локально и особенно ценен при высокой мощности. Жирные кислоты приходят из жировой ткани, циркулирующих липопротеинов и внутримышечных капель. Кетоновые тела синтезирует печень, когда доступность углеводов и инсулиновый сигнал снижены; они становятся дополнительным, но не единственным топливом. Аминокислоты также могут вносить вклад, однако их окисление хуже оценивается простой газообменной моделью.
Запасы асимметричны. Гликоген ограничен и удерживает воду; жировой резерв энергетически плотнее и намного больше. Из-за этого организм быстро защищает углеводный баланс и гибко меняет окисление углеводов, тогда как соответствие окисления жира его поступлению часто формируется медленнее. Концептуальная модель Flatt полезна как объяснение этой асимметрии, но не даёт права предсказывать аппетит конкретного человека только по одному измерению. [32]
АТФ не хранится в количестве, достаточном для долгой работы. Фосфокреатин поддерживает секунды, гликолиз — быстрый поток, митохондриальное окисление — устойчивую выработку из ацетил-КоА. Метаболическая гибкость проявляется до митохондрии — в мобилизации, транспорте и поглощении — и внутри неё, в выборе потока углерода и регуляции ферментов. Поэтому фраза «митохондрии сжигают жир» верна лишь как часть многоуровневой системы.
2.2. Органы как сеть
Печень стабилизирует доступность топлива: после еды пополняет гликоген и перерабатывает часть субстратов, между приёмами поддерживает глюкозу и при более длительном дефиците усиливает кетогенез. Жировая ткань подавляет липолиз при достаточном инсулиновом сигнале и мобилизует жирные кислоты, когда сигнал снижается и возрастает катехоламиновая стимуляция. Скелетная мышца — крупнейший изменяемый потребитель: после еды принимает глюкозу, при работе увеличивает расход в десятки раз относительно покоя, а с тренировкой меняет ферменты, транспортёры и митохондриальную сеть.
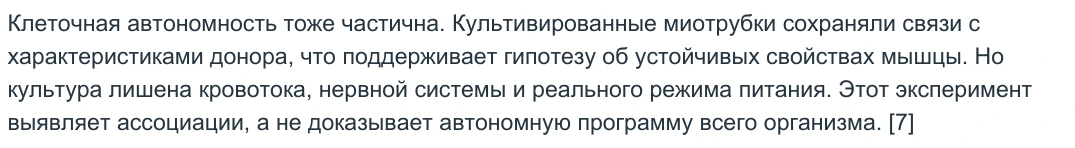
Гибкость — свойство координации. Если жировая ткань продолжает поставлять много свободных жирных кислот после еды, а мышца плохо увеличивает утилизацию глюкозы, проблема выглядит как конкуренция субстратов, хотя возникает из рассогласования органов и сигналов. Именно поэтому исследования комбинируют системные методы с балансом через конечность, биопсиями и культивированными миотрубками. [7] [9]
Мозг, сердце и кишечник тоже участвуют, но их топливные приоритеты отличаются. Курс фокусируется на печени, жировой ткани и скелетной мышце, потому что именно они управляют большими потоками в повседневном цикле еда — покой — движение. Это аналитическое упрощение, а не утверждение, что остальные органы пассивны.
Переключатель внутри клетки
3.1. Инсулин, AMPK и доступность субстрата
После углеводсодержащей еды повышается отношение инсулина к глюкагону. В мышце усиливается транслокация GLUT4, растут захват глюкозы, её окисление и синтез гликогена. В жировой ткани инсулин снижает липолиз. В печени меняются гликогеновый и липидный потоки. Это не бинарный выключатель: амплитуда зависит от состава еды, предшествующей активности, заполнения гликогена и чувствительности тканей.
При росте отношения AMP/ATP активируется AMPK. Один из путей — фосфорилирование ACC, снижение малонил-КоА и уменьшение торможения CPT1, через который длинноцепочечные жирные кислоты входят в митохондриальный маршрут. Это правдоподобный механизм
расширения потока жира при дефиците энергии, но реальный человек регулирует его вместе с транспортом жирных кислот, липолизом, кровотоком и мощностью митохондрий. [6]
Пируватдегидрогеназа направляет углерод гликолиза в ацетил-КоА. Её активность быстро меняется через фосфорилирование и доступность субстратов. Когда возрастает поток жирных кислот, образуются сигналы, способные ограничивать окисление глюкозы; при доступности глюкозы усиливаются пути, ограничивающие вход жирных кислот. Цикл Рэндла описывает реальную взаимность, но современная интерпретация не сводит инсулинорезистентность к простому «жир блокирует сахар». [31] [1]
3.2. Митохондриальная мощность и гибкость — не одно и то же
Тренированный спортсмен может иметь высокий внутримышечный запас триглицеридов и при этом хорошую чувствительность к инсулину — так называемый «парадокс атлета». Различие, вероятно, создают оборот липидных капель, локализация и формы промежуточных липидов, а не сам факт наличия жира. Поэтому визуализация жировой капли без данных о потоке мало говорит о гибкости.
Как это измеряют — и где легко ошибиться
0,70 ~0,85 1,00
большая доля жиров смешанное топливо большая доля углеводов
RQ — снимок контекста, а не оценка силы воли или «качества метаболизма»
Схема 2. Интерпретация RQ применима в устойчивом состоянии и зависит от условий измерения.
Больше контроля — уже вопрос
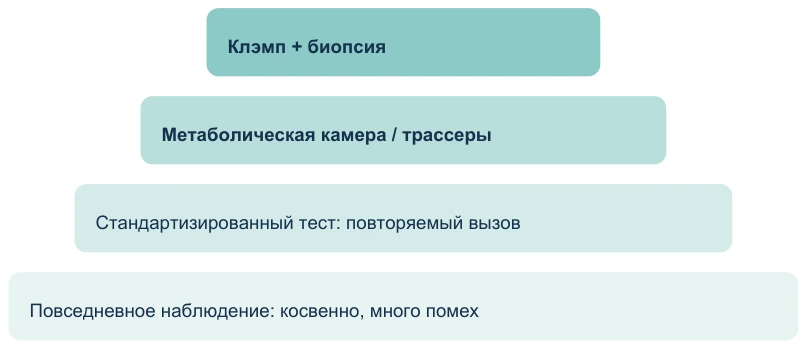
Схема 3. Чем строже контроль, тем точнее ответ — и тем уже вопрос.
4.1. RQ, RER и непрямая калориметрия
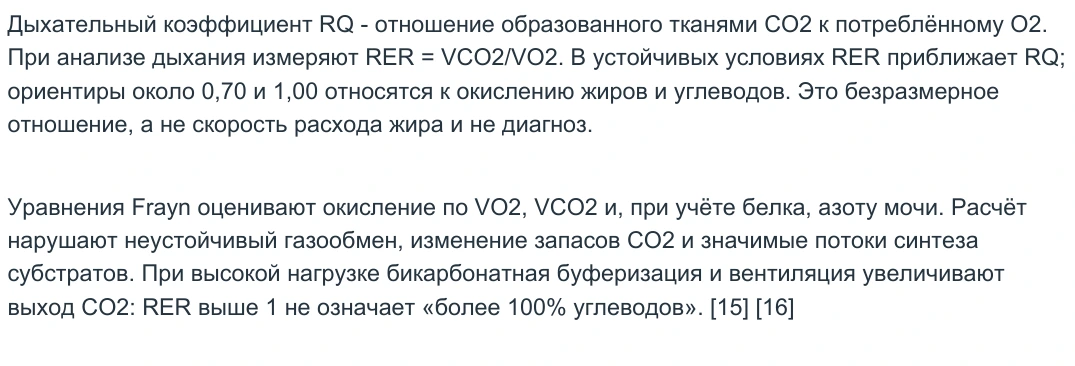
Одиночное утреннее измерение показывает состояние, но не гибкость. Для оценки переключения нужен вызов: еда, инсулиновый клэмп, изменение состава рациона, стандартизированная нагрузка или суточная камера. Нужно сравнивать как минимум две точки, а лучше кривую. Даже тогда результат относится к выбранному вызову.
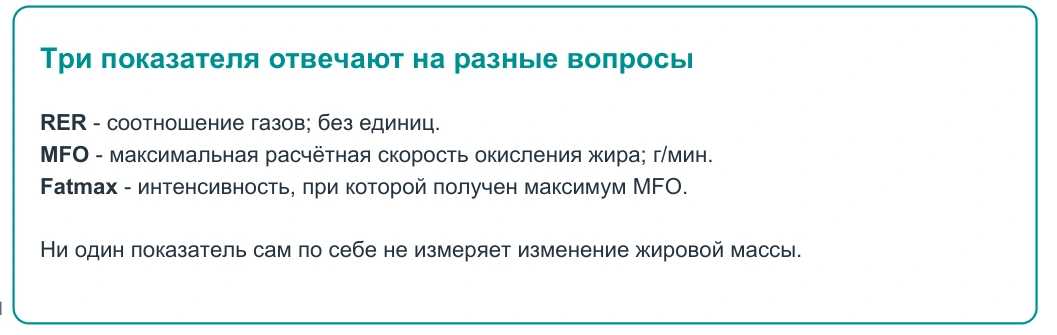
П
4.2. Клэмп, камера, трассеры и биопсия
Метаболическая камера измеряет газообмен за сутки и захватывает сон, еду и активность. Это ближе к реальному циклу, но дорого и ограничивает естественное поведение. Изотопные трассеры различают эндогенную и экзогенную глюкозу или жирные кислоты. Биопсия показывает ферменты, липидные формы и митохондрии в конкретной мышце. Каждый метод отвечает на узкий вопрос, а сильный дизайн соединяет несколько уровней.
Источники и Список литературы
- 1. Kelley DE, Mandarino LJ. (2000). Fuel selection in human skeletal muscle in insulin resistance: a reexamination. DOI: 10.2337/diabetes.49.5.677 Обзор уточняет классическую картину выбора топлива в мышце. Механизм конкуренции субстратов сам по себе не объясняет все случаи нарушения чувствительности к инсулину. https://pubmed.ncbi.nlm.nih.gov/10905472/
- 2. Galgani JE, Moro C, Ravussin E. (2008). Metabolic flexibility and insulin resistance. DOI: 10.1152/ajpendo.90558.2008 Гибкость зависит от вызова и доступности субстрата. Обзор обсуждает смещение интерпретации ΔRQ при различиях в захвате глюкозы; причинный вывод из одного показателя недостаточен. https://pmc.ncbi.nlm.nih.gov/articles/PMC2584808/
- 3. Galgani JE et al. (2008). Metabolic flexibility in response to glucose is not impaired in people with type 2 diabetes after controlling for glucose disposal rate. DOI: 10.2337/db08-0043 59 и 42 участника в сравниваемых группах. Утилизация глюкозы объясняла 46% вариации ΔRQ; ещё 3% — свободные жирные кислоты. Поправка меняет сравнение, но не доказывает причинность. https://pubmed.ncbi.nlm.nih.gov/18285553/
- 4. Smith RL, Soeters MR, Wüst RCI, Houtkooper RH. (2018). Metabolic Flexibility as an Adaptation to Energy Resources and Requirements in Health and Disease. DOI: 10.1210/er.2017-00211 Обзор координации печени, мышцы и жировой ткани: распознавание, транспорт, хранение и использование топлива. Механизмы не равны доказательству бытового вмешательства. https://pmc.ncbi.nlm.nih.gov/articles/PMC6093334/
- 5. Goodpaster BH, Sparks LM. (2017). Metabolic Flexibility in Health and Disease. DOI: 10.1016/j.cmet.2017.04.015 Разбирает адаптацию к изменению потребности, питания и нагрузки. Системная гибкость шире одной мышечной метрики; клинический контекст обзора не является протоколом курса. https://pmc.ncbi.nlm.nih.gov/articles/PMC5513193/
- 6. Muoio DM. (2014). Metabolic inflexibility: when mitochondrial indecision leads to metabolic gridlock. DOI: 10.1016/j.cell.2014.11.034 Механистическая концепция субстратной перегрузки и митохондриальной регуляции. Автор прямо обозначает часть картины как предположительную; AMPK не превращён в универсальную мишень самонастройки. https://pmc.ncbi.nlm.nih.gov/articles/PMC4765362/
- 7. Ukropcova B, McNeil M, Sereda O, de Jonge L, Xie H, Bray GA, Smith SR. (2005). Dynamic changes in fat oxidation in human primary myocytes mirror metabolic characteristics of the donor. DOI: 10.1172/jci24332 Клетки от 16 молодых мужчин сохраняли связи с характеристиками донора. Исследование поддерживает гипотезу устойчивых клеточных свойств; корреляции и культура клеток не дают персонального прогноза. https://pubmed.ncbi.nlm.nih.gov/16007256/
- 8. Ukropcova B, Sereda O, de Jonge L, Bogacka I, Nguyen T, Xie H, Bray GA, Smith SR. (2007). Family history of diabetes links impaired substrate switching and reduced mitochondrial content in skeletal muscle. DOI: 10.2337/db06-0521 16 мужчин с семейным анамнезом и 34 без него. Сочетание меньшей адаптации к рациону и меньшего митохондриального содержания; дизайн не разделяет полностью наследственность и среду. https://pubmed.ncbi.nlm.nih.gov/17327442/
- 9. Kelley DE, Goodpaster B, Wing RR, Simoneau JA. (1999). Skeletal muscle fatty acid metabolism in association with insulin resistance, obesity, and weight loss. DOI: 10.1152/ajpendo.1999.277.6.e1130 16 участников без ожирения и 40 с ожирением; RQ ноги натощак 0,83 и 0,90. Захват жирных кислот и их окисление различались по смыслу. https://pubmed.ncbi.nlm.nih.gov/10600804/
- 10. Rynders CA, Blanc S, DeJong N, Bessesen DH, Bergouignan A. (2018). Sedentary behaviour is a key determinant of metabolic inflexibility. DOI: 10.1113/jp273282 Обзор роли повседневной активности и непрерывного сидения. Обсуждает альтернативные определения гибкости; не устанавливает единую норму «экономичности» или точную дозу прогулки. https://pubmed.ncbi.nlm.nih.gov/28543022/
- 11. Rudwill F et al. (2018). Metabolic Inflexibility Is an Early Marker of Bed-Rest-Induced Glucose Intolerance Even When Fat Mass Is Stable. DOI: 10.1210/jc.2017-02267 10 мужчин; 21 день постельного режима, перекрёстный дизайн. Пищевой ответ ухудшался при стабильном энергетическом балансе. Белковая контрмера не предотвратила изменения; офисная жизнь существенно отличается. https://pubmed.ncbi.nlm.nih.gov/29546280/
- 12. Bergouignan A, Rudwill F, Simon C, Blanc S. (2011). Physical inactivity as the culprit of metabolic inflexibility: evidence from bed-rest studies. DOI: 10.1152/japplphysiol.00698.2011 Обзор моделей постельного режима. Объясняет, почему неактивность нельзя рассматривать только как низкий расход калорий. Строгий постельный режим не эквивалентен обычному сидячему рабочему дню. https://pubmed.ncbi.nlm.nih.gov/21836047/
- 13. Eggelbusch M et al. (2024). The impact of bed rest on human skeletal muscle metabolism. DOI: 10.1016/j.xcrm.2023.101372 Временная последовательность изменений гликогена, GLUT4, липидов и митохондрий при постельном режиме. Наблюдаемый порядок поддерживает механизм, но не изолирует единственную причинную цепь. https://pubmed.ncbi.nlm.nih.gov/38232697/
- 14. Romijn JA, Coyle EF, Sidossis LS, Gastaldelli A, Horowitz JF, Endert E, Wolfe RR. (1993). Regulation of endogenous fat and carbohydrate metabolism in relation to exercise intensity and duration. DOI: 10.1152/ajpendo.1993.265.3.e380 5 тренированных участников; 25, 65 и 85% VO2max. Углеводный поток увеличивался с интенсивностью; при двухчасовой работе менялся вклад плазменных и мышечных субстратов. Нормы для населения не выводятся. https://pubmed.ncbi.nlm.nih.gov/8214047/
- 15. Jeukendrup AE, Wallis GA. (2005). Measurement of substrate oxidation during exercise by means of gas exchange measurements. DOI: 10.1055/s-2004-830512 Методические ограничения расчёта окисления по газообмену. Особенно важны устойчивость состояния и изменения бикарбонатного пула; RER при интенсивной работе не равен доле окисляемых углеводов. https://pubmed.ncbi.nlm.nih.gov/15702454/
- 16. Frayn KN. (1983). Calculation of substrate oxidation rates in vivo from gaseous exchange. DOI: 10.1152/jappl.1983.55.2.628 Стехиометрические уравнения и их предпосылки. Липогенез, глюконеогенез и несбалансированные потоки лактата или кетонов могут менять интерпретацию расчётных значений. https://pubmed.ncbi.nlm.nih.gov/6618956/
- 17. Amaro-Gahete FJ, Sanchez-Delgado G, Jurado-Fasoli L, De-la-O A, Castillo MJ, Helge JW, Ruiz JR. (2019). Assessment of maximal fat oxidation during exercise: A systematic review. DOI: 10.1111/sms.13424 Систематический обзор методики MFO/Fatmax: эргометр, ступени, формулы, время суток и предшествующее питание. Межлабораторные сравнения без согласования протоколов ненадёжны. https://pubmed.ncbi.nlm.nih.gov/30929281/
- 18. Yin M, Chen Z, Nassis GP, Liu H, Li H, Deng J, Li Y. (2023). Chronic high-intensity interval training and moderate-intensity continuous training are both effective in increasing maximum fat oxidation during exercise in overweight and obese adults: A meta-analysis. DOI: 10.1016/j.jesf.2023.08.001 13 исследований, 519 участников. Прямое сравнение HIIT и MICT: разница MFO 0,01 г/мин, 95% ДИ от -0,02 до 0,04; I²=64%. https://pubmed.ncbi.nlm.nih.gov/37701124/
- 19. Van Proeyen K, Szlufcik K, Nielens H, Pelgrim K, Deldicque L, Hesselink M, Van Veldhoven PP, Hespel P. (2010). Training in the fasted state improves glucose tolerance during fat-rich diet. DOI: 10.1113/jphysiol.2010.196493 27 молодых мужчин; шесть недель гиперкалорийного рациона и разные условия тренировок. Результат относится к пищевому избытку и малым группам; он не обосновывает обязательность нагрузки натощак. https://pubmed.ncbi.nlm.nih.gov/20837645/
- 20. Zouhal H, Saeidi A, Salhi A, Li H, Essop MF, Laher I, Rhibi F, Amani-Shalamzari S, Ben Abderrahman A. (2020). Exercise Training and Fasting: Current Insights. DOI: 10.2147/oajsm.s224919 Обзор объединяет различные протоколы голодания и тренировок. Данные о работоспособности неоднородны; острый рост окисления жира не доказывает устойчивое преимущество по составу тела. https://pmc.ncbi.nlm.nih.gov/articles/PMC6983467/
- 21. Malin SK, Haus JM, Solomon TP, Blaszczak A, Kashyap SR, Kirwan JP. (2013). Insulin sensitivity and metabolic flexibility following exercise training among different obese insulin-resistant phenotypes. DOI: 10.1152/ajpendo.00441.2013 24 пожилых участника со специфическими нарушениями регуляции глюкозы. Ответ на 12 недель нагрузки зависел от исходной группы. Исследовательская интенсивность не является рекомендацией читателю. https://pubmed.ncbi.nlm.nih.gov/24064339/
- 22. Galgani JE, de Jonge L, Most MM, Bray GA, Smith SR. (2010). Effect of a 3-day high-fat feeding period on carbohydrate balance and ad libitum energy intake in humans. DOI: 10.1038/ijo.2010.16 58 участников; после смены рациона суточный RQ снизился с 0,87 до 0,83. Средний накопленный жировой баланс при этом был положительным. Поступление и окисление необходимо рассматривать вместе. https://pubmed.ncbi.nlm.nih.gov/20195283/
- 23. Verboeket-van de Venne WP, Westerterp KR, ten Hoor F. (1994). Substrate utilization in man: effects of dietary fat and carbohydrate. DOI: 10.1016/0026-0495(94)90237-2 14 молодых женщин, три варианта рациона. Окисление адаптировалось к составу питания; группы пищевого поведения реагировали неодинаково. https://pubmed.ncbi.nlm.nih.gov/8121294/
- 24. Peterson CM, Zhang B, Johannsen DL, Ravussin E. (2017). Eight weeks of overfeeding alters substrate partitioning without affecting metabolic flexibility in men. DOI: 10.1038/ijo.2017.58 29 мужчин; восемь недель переедания. Клэмповая гибкость значимо не изменилась; камерная метрика p=0,08. Снижение чувствительности зависело от дозы инсулина. https://pubmed.ncbi.nlm.nih.gov/28262678/
- 25. Sutton EF, Beyl R, Early KS, Cefalu WT, Ravussin E, Peterson CM. (2018). Early Time-Restricted Feeding Improves Insulin Sensitivity, Blood Pressure, and Oxidative Stress Even without Weight Loss in Men with Prediabetes. DOI: 10.1016/j.cmet.2018.04.010 Пятинедельный контролируемый перекрёстный опыт раннего окна у мужчин с предиабетом. Полезен как проверка концепции, но не устанавливает обязательное время ужина для всех. https://pubmed.ncbi.nlm.nih.gov/29754952/
- 26. Ravussin E, Beyl RA, Poggiogalle E, Hsia DS, Peterson CM. (2019). Early Time-Restricted Feeding Reduces Appetite and Increases Fat Oxidation But Does Not Affect Energy Expenditure in Humans. DOI: 10.1002/oby.22518 11 взрослых, два расписания по четыре дня. Расход: 10±16 ккал/сут, p=0,55; NPRQ: -0,021±0,010. Определение гибкости в работе: диапазон часовых NPRQ. https://pubmed.ncbi.nlm.nih.gov/31339000/
- 27. Gu C, Brereton N, Schweitzer A, Cotter M, Duan D, Børsheim E, Wolfe RR, Pham LV, Polotsky VY, Jun JC. (2020). Metabolic Effects of Late Dinner in Healthy Volunteers-A Randomized Crossover Clinical Trial. DOI: 10.1210/clinem/dgaa354 20 добровольцев; ужин 18:00 или 22:00 при одинаковом времени сна. Окисление пищевой жирной кислоты оценивали трассером. Острый результат не доказывает долговременный набор жировой массы. https://pubmed.ncbi.nlm.nih.gov/32525525/
- 28. Carabuena TJ, Boege HL, Bhatti MZ, Whyte KJ, Cheng B, St-Onge MP. (2022). Delaying mealtimes reduces fat oxidation: A randomized, crossover, controlled feeding study. DOI: 10.1002/oby.23566 7 завершивших; питание сдвинуто на четыре часа при постоянном сне и длине окна. Изменился постпрандиальный газообмен; суточный расход не различался. https://pubmed.ncbi.nlm.nih.gov/36238978/
- 29. Zitting KM et al. (2018). Human Resting Energy Expenditure Varies with Circadian Phase. DOI: 10.1016/j.cub.2018.10.005 7 участников; протокол отделял циркадную фазу от сна и питания. Расход покоя и RQ зависели от внутренних часов. Малая выборка и лабораторная модель ограничивают бытовые выводы. https://pubmed.ncbi.nlm.nih.gov/30416064/
- 30. Shechter A, Rising R, Wolfe S, Albu JB, St-Onge MP. (2014). Postprandial thermogenesis and substrate oxidation are unaffected by sleep restriction. DOI: 10.1038/ijo.2013.239 10 женщин, три ночи с разной продолжительностью сна. RQ натощак снизился при коротком сне; постпрандиальный ответ значимо не различался. Механизм «стрессовой адаптации» этим опытом не доказан. https://pubmed.ncbi.nlm.nih.gov/24352294/
- 31. Randle PJ. (1998). Regulatory interactions between lipids and carbohydrates: the glucose fatty acid cycle after 35 years. DOI: 10.1002/(sici)1099-0895(199812)14:4<263::aid-dmr233>3.0.co;2-c Исторический обзор взаимной регуляции глюкозы и жирных кислот. Полезен для объяснения конкуренции субстратов; не даёт оснований запрещать какой-либо макронутриент. https://pubmed.ncbi.nlm.nih.gov/10095997/
- 32. Flatt JP. (1987). The difference in the storage capacities for carbohydrate and for fat, and its implications in the regulation of body weight. DOI: 10.1111/j.1749-6632.1987.tb36202.x Теоретическая двухкомпартментная модель запасов гликогена и жира. Объясняет асимметрию хранения; её модель аппетита не следует трактовать как подтверждённое персональное правило. https://pubmed.ncbi.nlm.nih.gov/3300476/
- 33. Людинина А.Ю., Бушманова Е.А., Бойко Е.Р. (2024). Роль жирных кислот в повышении аэробной работоспособности спортсменов: обзор и перспективы исследования. DOI: 10.31857/S0131164624030095 Российский обзор механизмов и ограничений окисления жирных кислот. https://hsm.susu.ru/hsm/article/download/811/297/ https://doi.org/10.31857/S0131164624030095
- 34. Березина А.В., Беляева О.Д., Баженова Е.А. и др. (2010). Особенности окисления жиров при физических нагрузках различной интенсивности у больных абдоминальным ожирением. 34 90 участников 30-55 лет с абдоминальным ожирением. Максимум окисления жира наблюдался при низкой интенсивности; связь с порогом r=0,6. https://www.mediasphera.ru/issues/problemy-endokrinologii/2010/2/030375-9660201024
- 35. Брель Ю.И. (2014). Взаимодействие и адаптация систем энергообеспечения скелетных мышц при физических нагрузках. Проблемы здоровья и экологии. 3(41):47-53. 35 Русскоязычный обзор автора из Гомельского государственного медицинского университета, Беларусь. https://cyberleninka.ru/article/n/vzaimodeystvie-i-adaptatsiya-sistem-energoobespecheniya-skeletnyh-myshts-pri-fizicheskih-nagruzkah
- 36. Сорокина Л.С., Юдина С.С., Петров А.С., Еременко А.А. (2024). Возможности метаболического мониторинга методом непрямой калориметрии в условиях отделения анестезиологии, реанимации и интенсивной терапии. Обзор результатов международных и российских исследований. DOI: 10.17116/rbpdpm2024104120 Методический обзор в контексте анестезиологии и интенсивной терапии. Непрямая калориметрия оценивает энергозатраты по газообмену; это не прямая калориметрия. https://doi.org/10.17116/rbpdpm2024104120
- 37. Tarry EK et al. (2025). Divergent Changes in Peak Fat Oxidation and Fatmax Following 3-Day Dietary Interventions Are Related to Muscle Glycogen Availability in Men. DOI: 10.1111/sms.70132 40 мужчин, три дня двух рационов. Пиковое окисление жира изменилось вместе с гликогеном без выявленных изменений исследованных генов и белков. Долгосрочная польза не проверялась. https://doi.org/10.1111/sms.70132
- 38. van de Weijer T et al. (2013). Relationships between mitochondrial function and metabolic flexibility in type 2 diabetes mellitus. DOI: 10.1371/journal.pone.0051648 Первичное исследование использует трассеры для разделения продукции и утилизации глюкозы. Ассоциации не устанавливают причину. https://doi.org/10.1371/journal.pone.0051648
- 39. Людинина А.Ю., Гарнов И.О., Бушманова Е.А., Нутрихин А.В., Бойко Е.Р. (2020). Оценка взаимосвязи скорости окисления жира с показателями аэробной работоспособности у лыжников-гонщиков. DOI: 10.14529/hsm200101 Первичная российская работа: 24 лыжника, 11 МС и 13 КМС. У МС пик 0,77±0,16 г/мин, диапазон 0,45-0,93. Среднее±SD; общепопуляционной нормы нет. https://hsm.susu.ru/hsm/article/download/811/297/